الأفعى النفاثة

Bitis arietans

Puff Adder·Vipère heurtante

حالة الحفظ:LC(عالمي)·VU(المغرب)
اتجاه الأعداد:في تراجع
الأفعى النفاثة (Bitis arietans)، المغرب

تُعدّ الأفعى النفاثة من أكثر ثعابين المغرب شهرةً، وهي نوع مُتبقٍّ يشهد على صحراء كانت يوماً أكثر اخضراراً، صحراء كانت تربط النوع عبر معظم أفريقيا. أما أفاعي المغرب النفاثة فقد باتت اليوم معزولة عن سائر التجمعات الأفريقية. وهي كذلك حيوان لافت في شكله وسلوكه: ثعبان ثقيل ممتلئ، قادر مع ذلك على الانقضاض بسرعة مذهلة يعجز عنها البصر. وللأسف تواجه هذه الأفعى ضغوطاً متزايدة القسوة، من جمعٍ مكثّف ونفوقٍ على الطرق في نطاقها الضيّق جنوب المغرب، وهي في طريقها إلى أن تصبح أكثر ثعابين البلاد تهديداً، مصيرٌ محزن لثعبانٍ فريد كهذا.

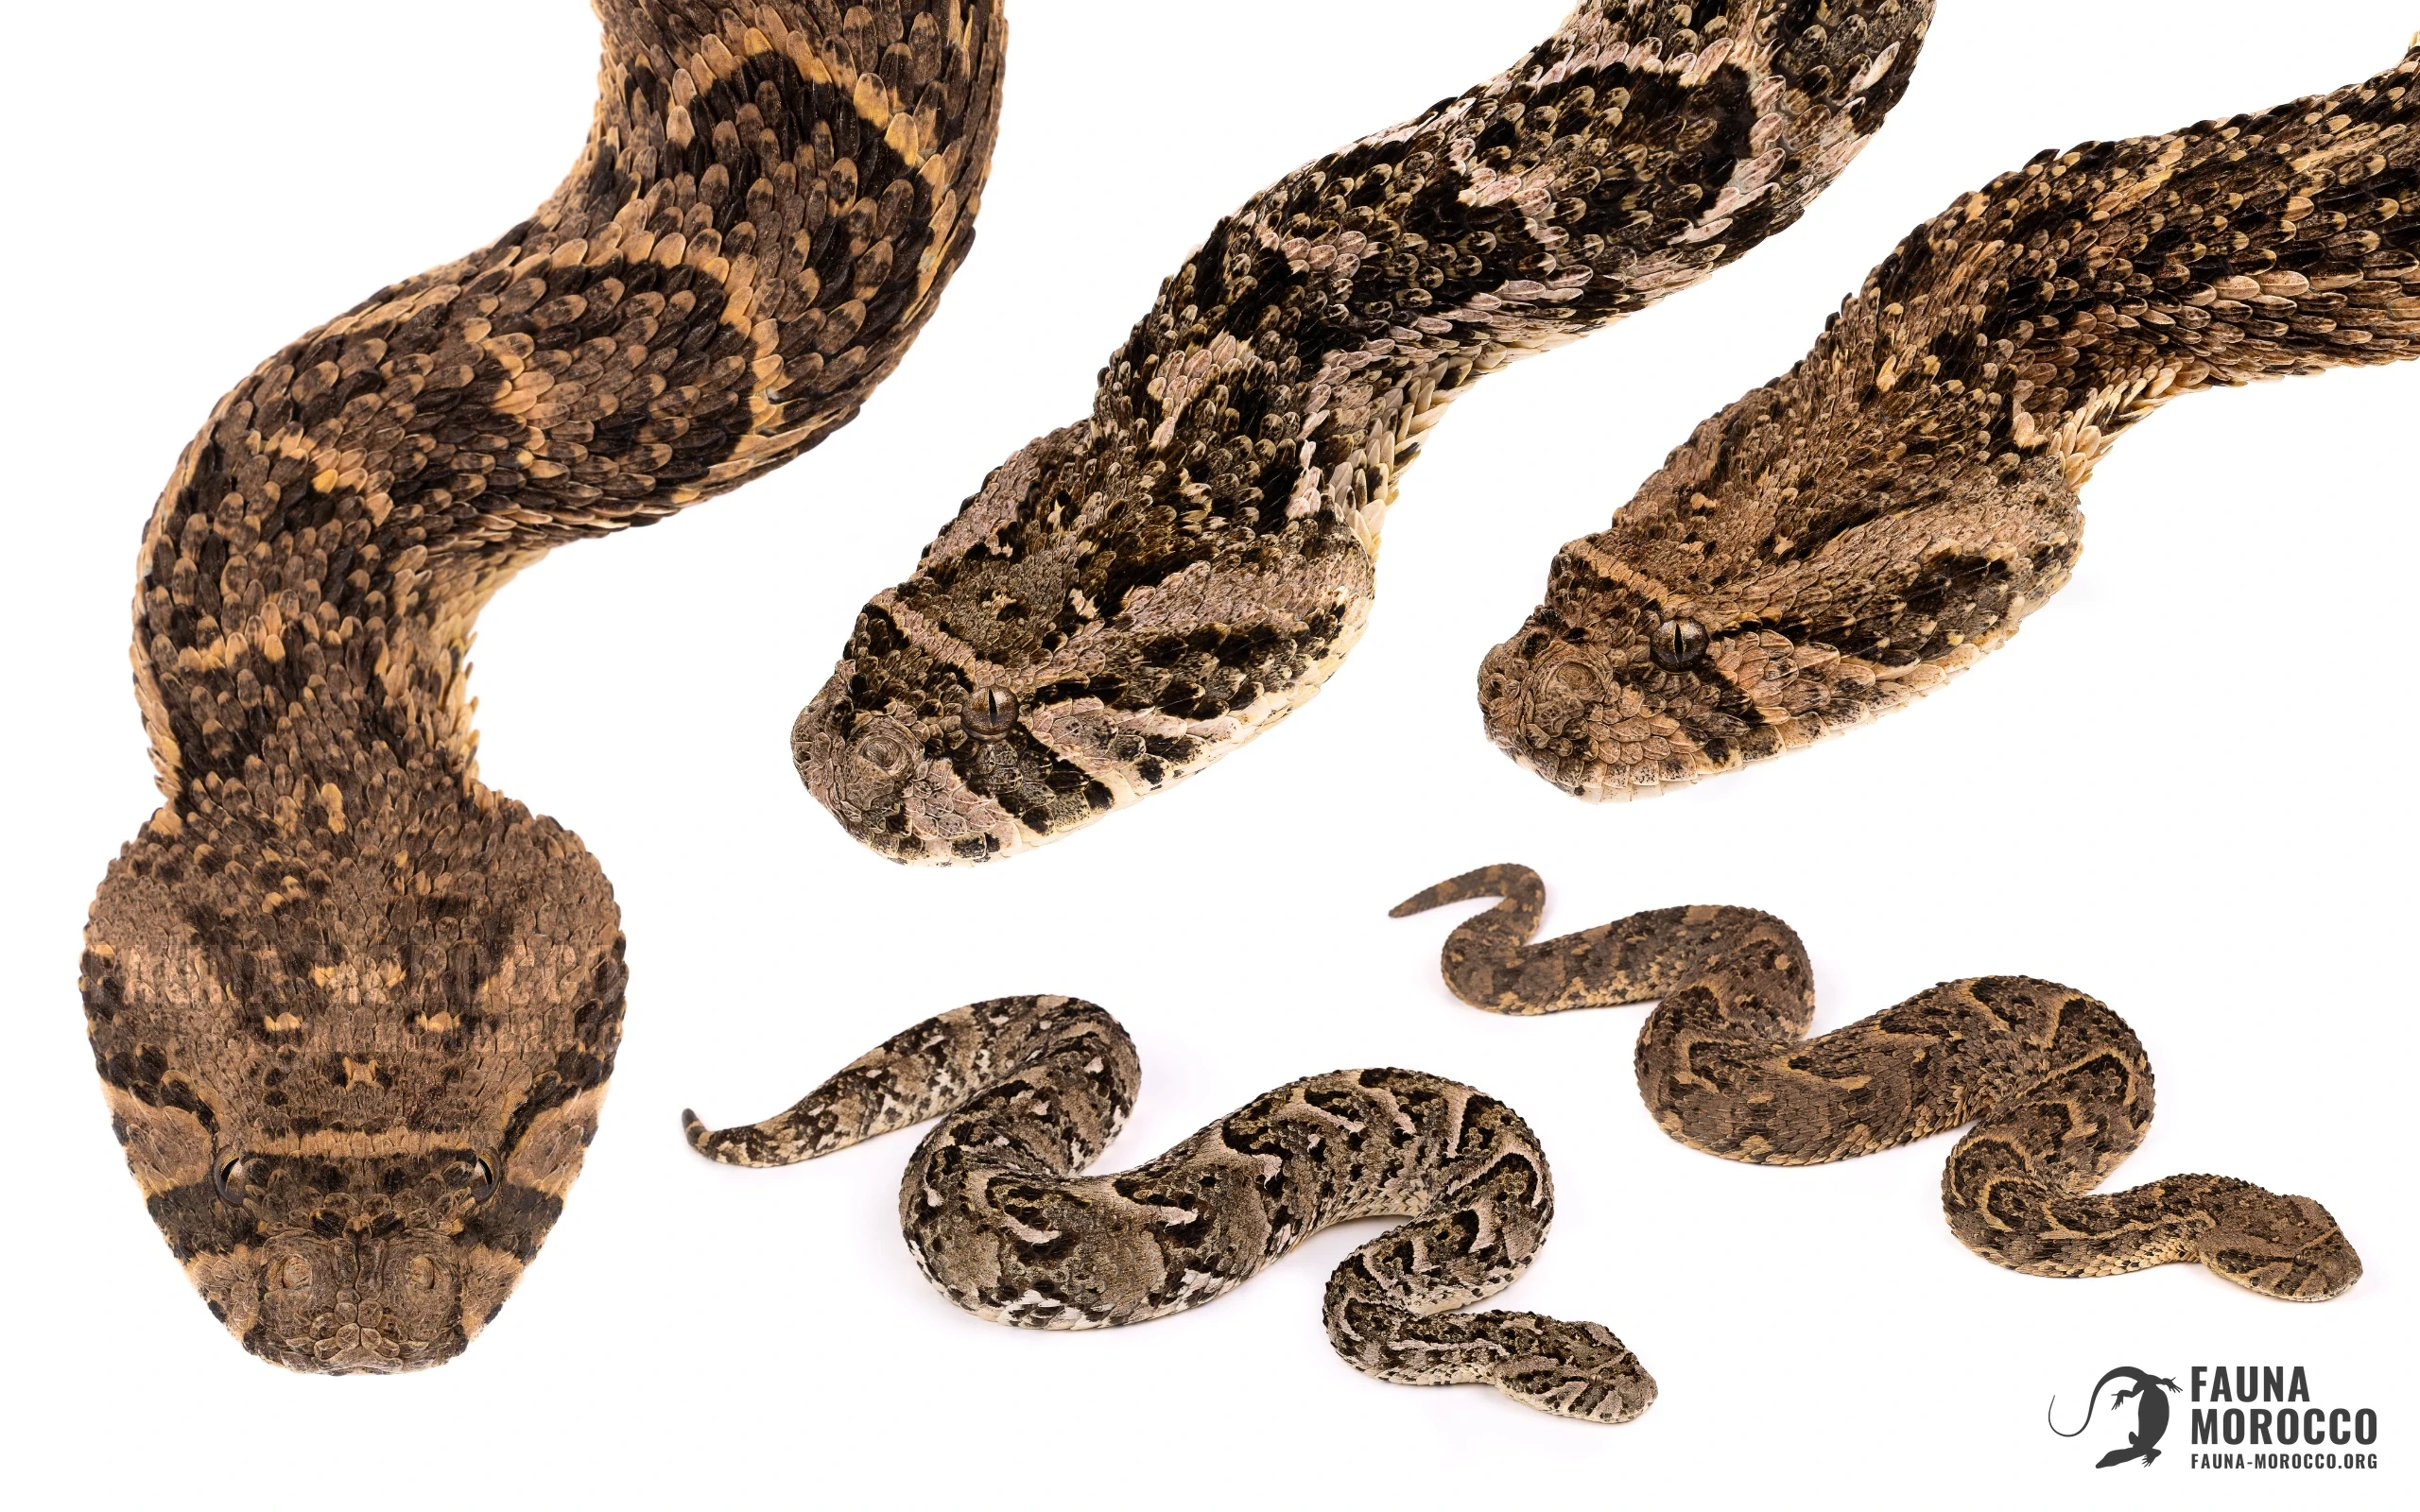
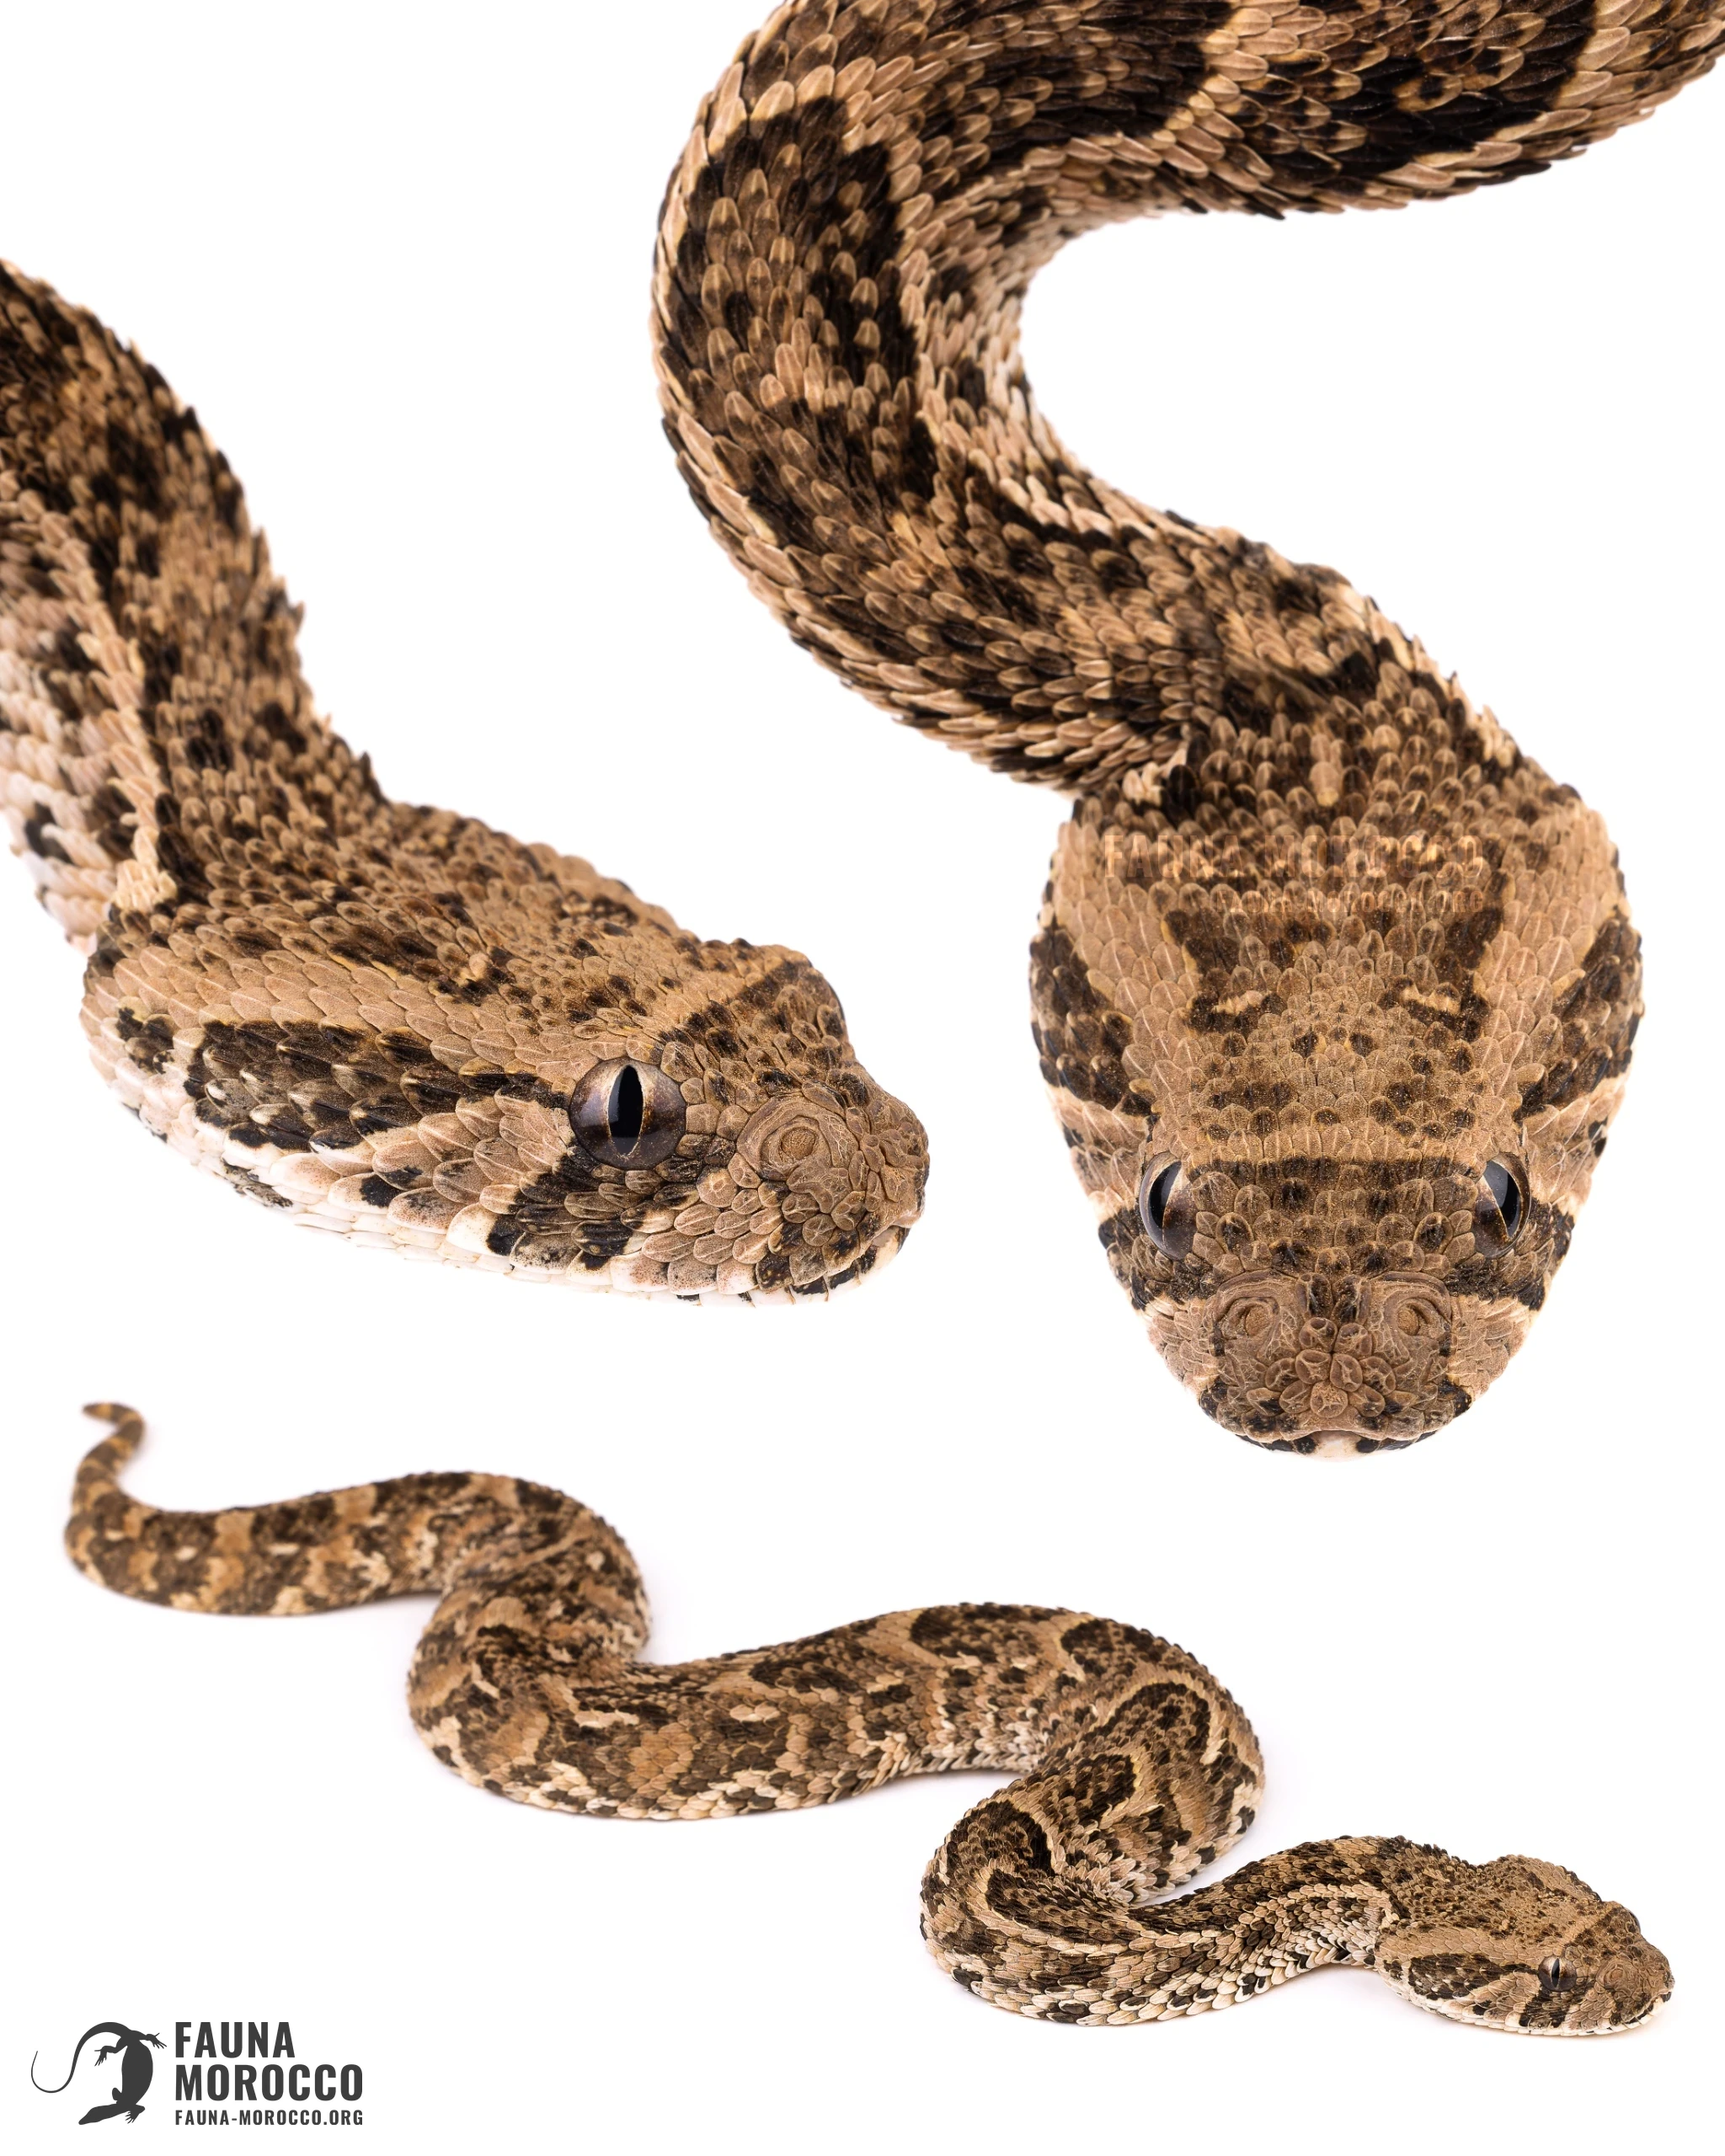
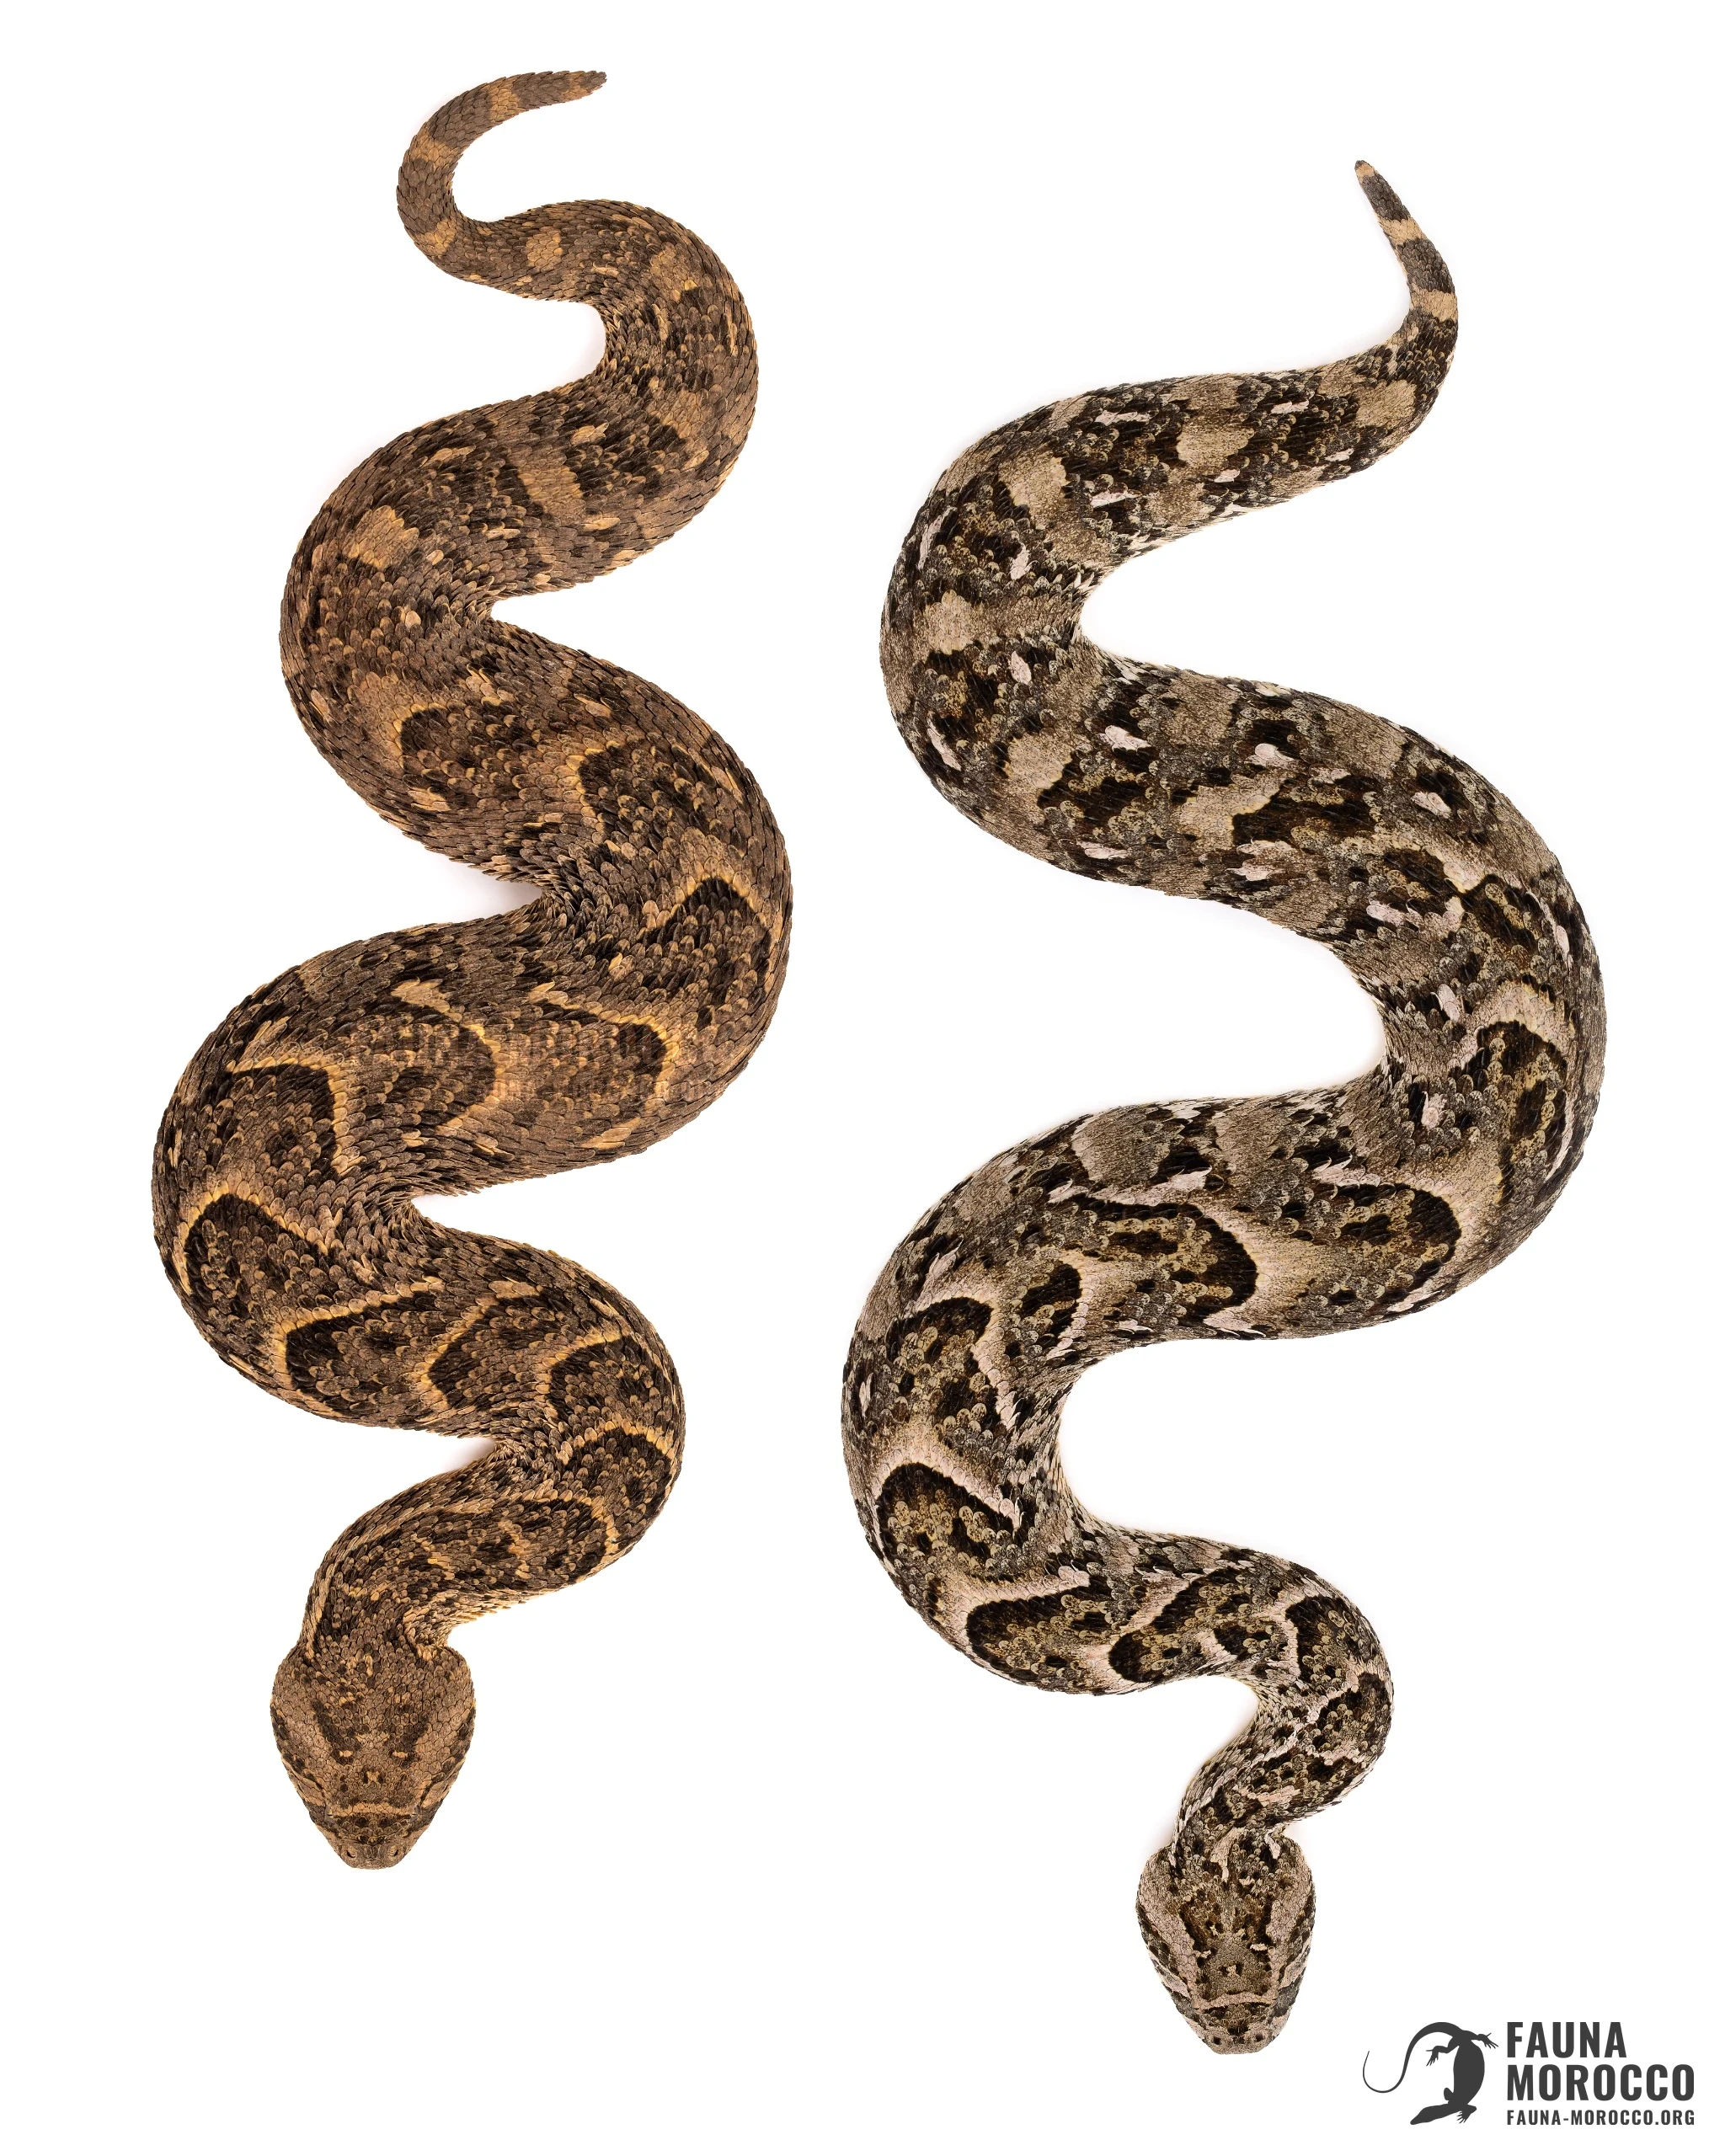
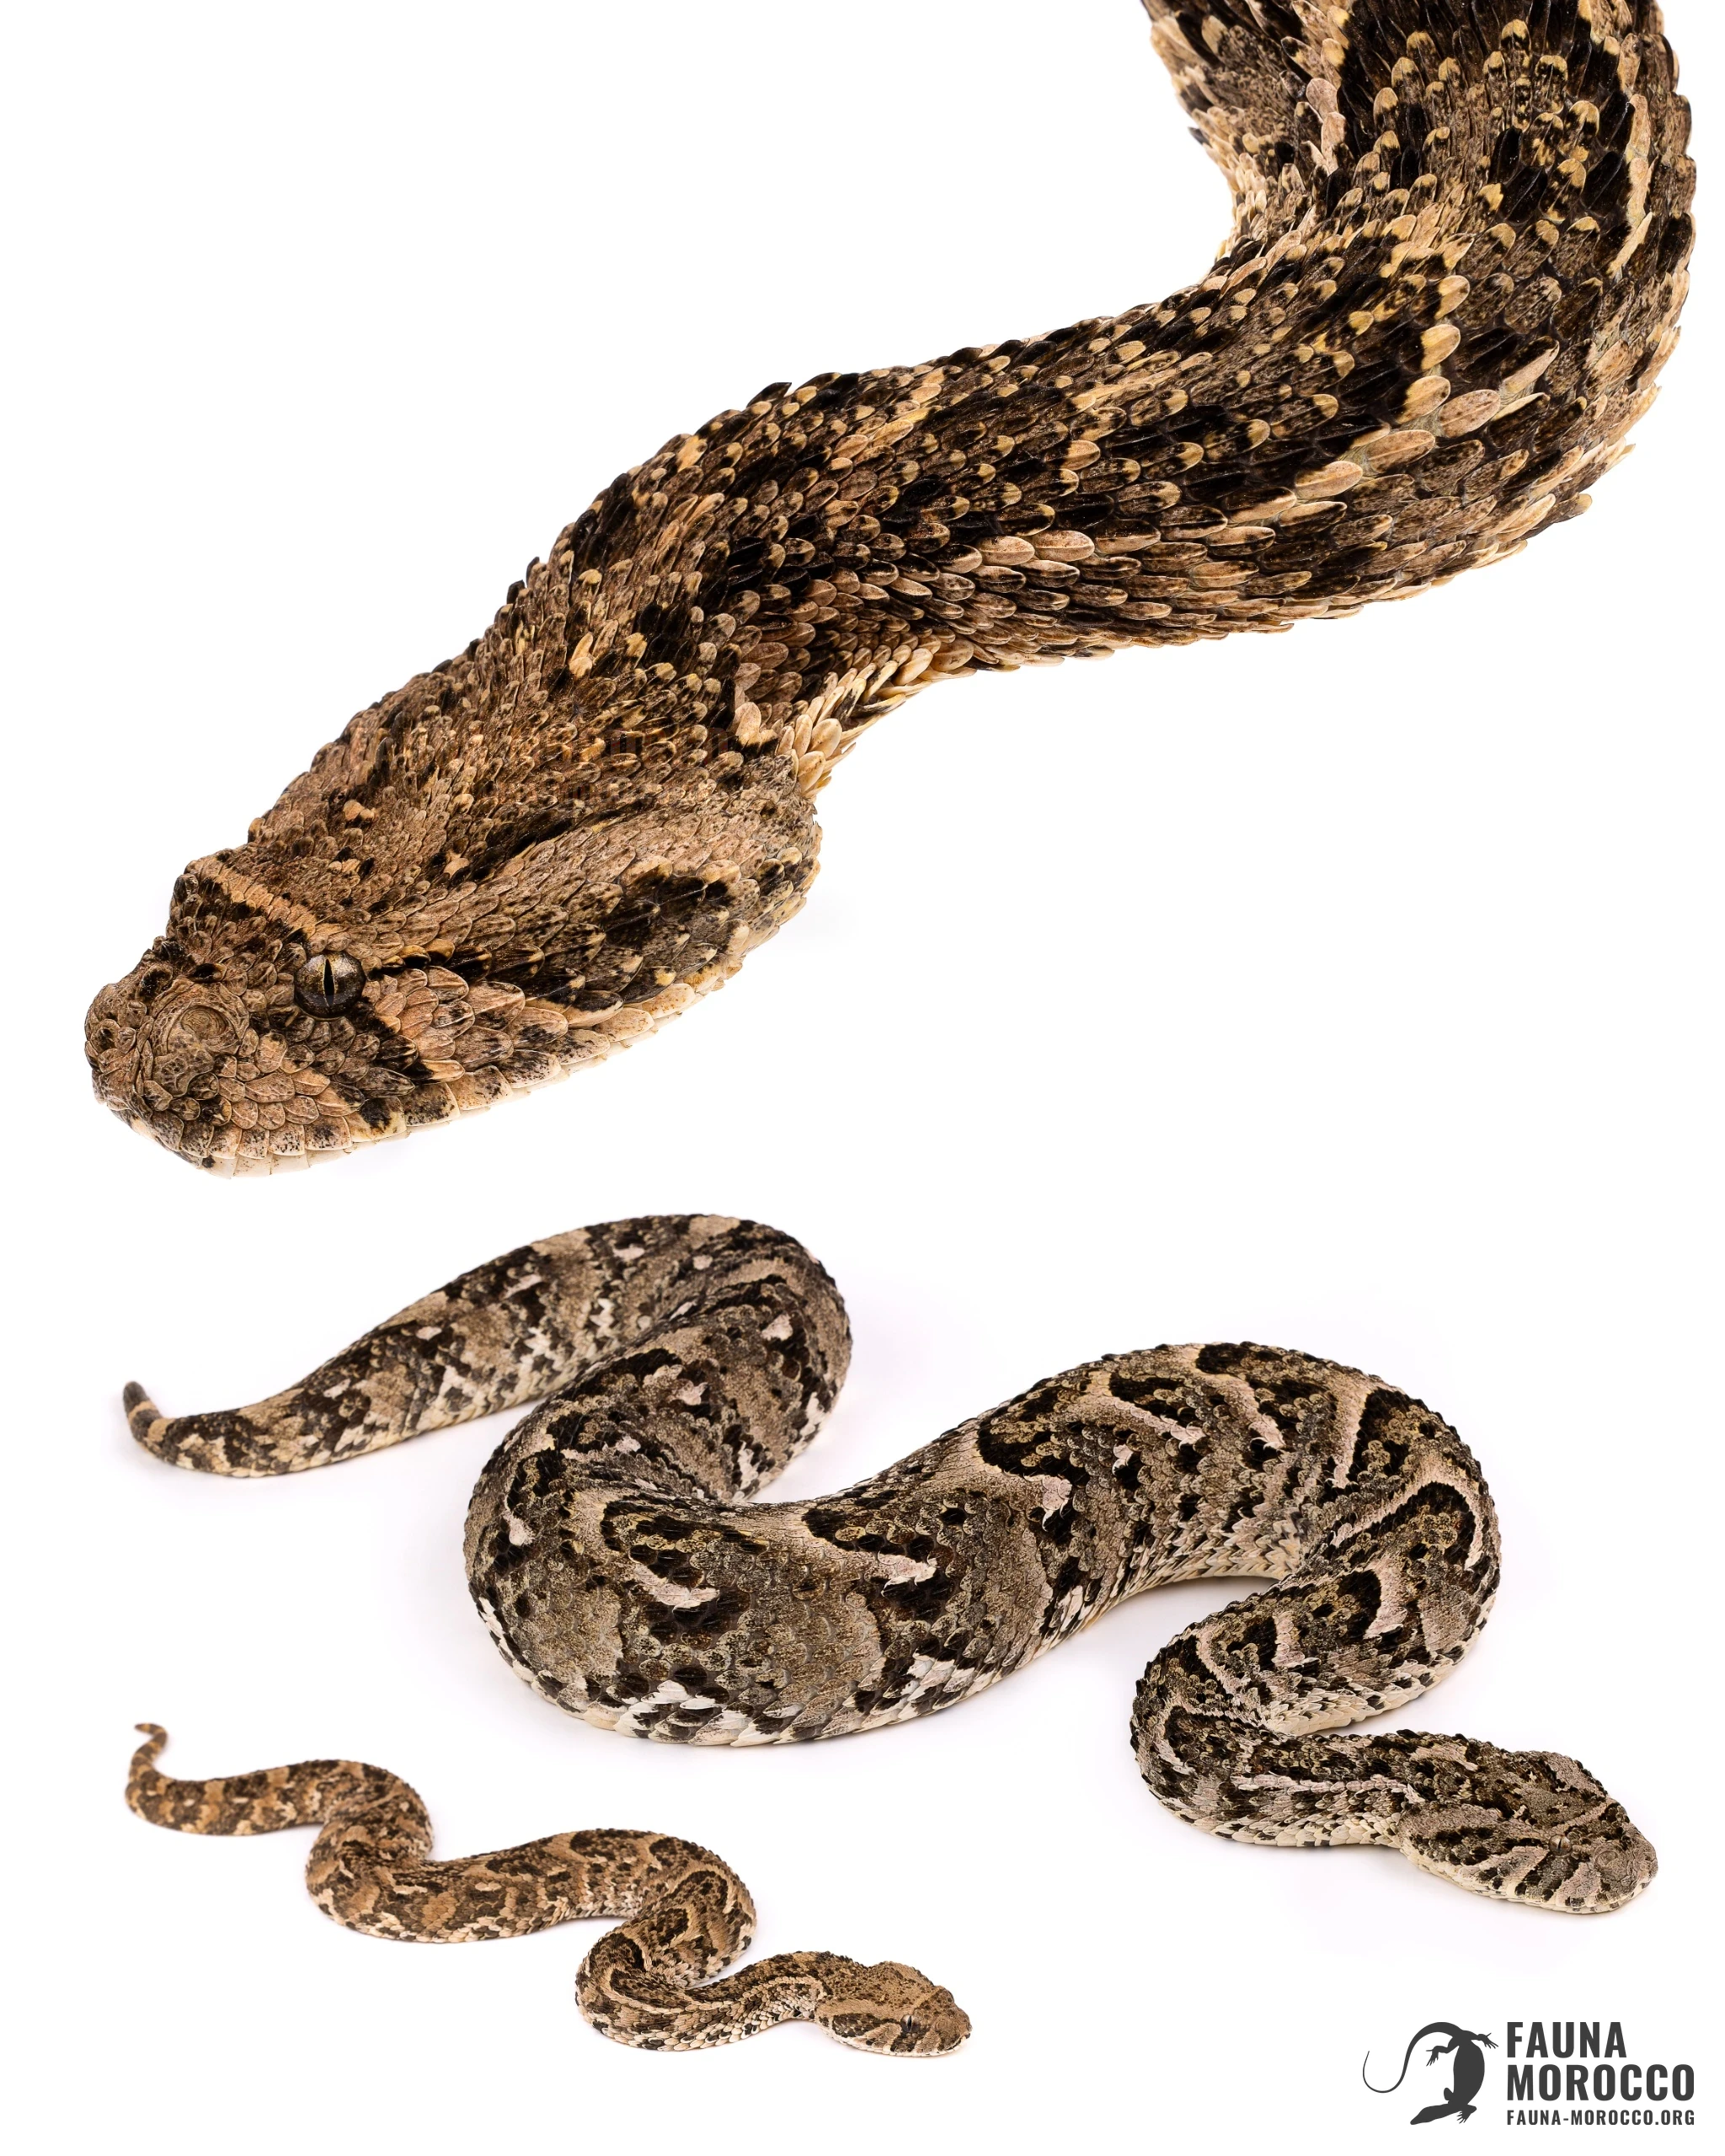
الأفعى النفاثة (Bitis arietans) أفعى كبيرة بالغة الامتلاء. وتُعرف في الدارجة المغربية باسم الهيشة، ويُقال لها أيضاً لفعى موناروب. جسمها قصير سميك ضخم بشكل غير متناسب، ما يجعل الحيوان بديناً بطيئاً. يبلغ طول الأفراد المغربية 1.2 م كحدّ أقصى5، ويقلّ متوسط طول البالغين عن 1 م17.

الرأس كبير مثلّث الشكل، منفصل بوضوح عن العنق، ومغطّى من الأعلى بحراشف صغيرة عديدة مُحدَّبة. المنخران كبيران متّجهان إلى الأعلى10، والعينان صغيرتان نسبياً بحدقة رأسية. وعادةً ما يمتدّ شريط داكن من الشفة العليا مروراً بالعين وعبر المنطقة الصدغية، مانحاً مظهراً مُقنّعاً. النوع صولينوغليفي، بنابين مجوّفين متحرّكين يصلان إلى 2 سم، يقعان في مقدّمة الفكّ العلوي لحقن السُمّ5. وهذان النابان من بين أطول أنياب الثعابين قاطبةً8.

الذيل قصير ومنفصل بوضوح عن الجسم. وهو أطول في الذكور ويستدقّ عند قاعدته بتدرّج أقلّ حدّةً منه في الإناث20. والحراشف الظهرية مُحدَّبة10.

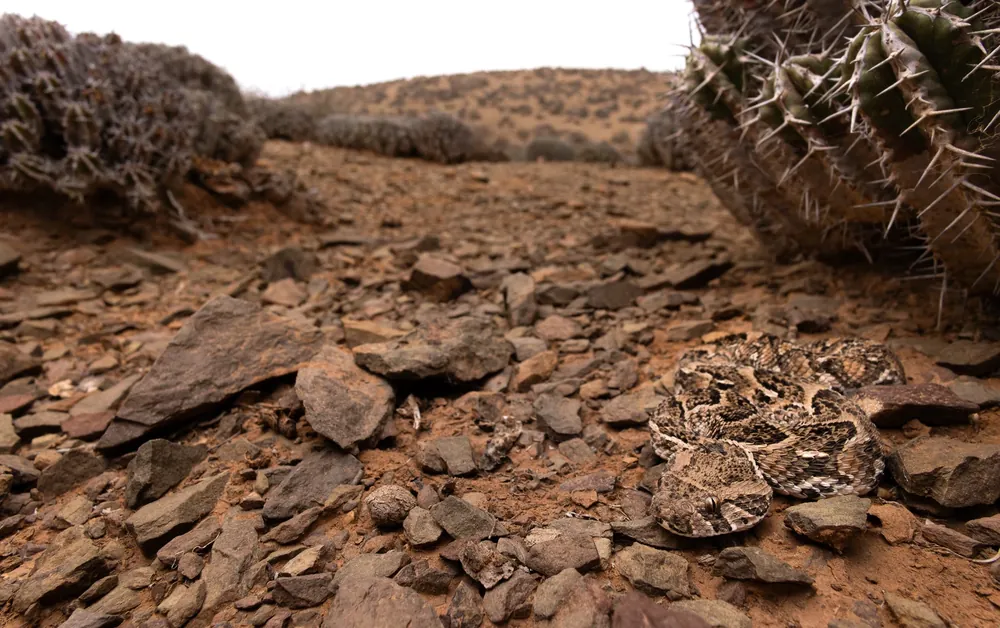
في المغرب، يتغيّر لون خلفية الأفعى النفاثة تغيّراً طفيفاً18. وهو غالباً بني باهت، تعلوه سلسلة من الأشكال المُدبّبة الداكنة ذات الحواف الفاتحة، تتّجه رؤوسها نحو الذيل. غير أنّ شدّة النقوش ودرجتها قد تتباين، ويبدو أنّ لون الأرضية يؤثّر في لون الثعابين20. أما البطن فمائل إلى البياض وضعيف التصبّغ20.

على نطاق كامل الانتشار، يلفت النوع بقلّة تباينه: فبالنسبة لثعبان منتشر في معظم قارّة، يبقى التمايز الشكلي ضئيلاً، ولم تجد أيّ دراسة شكلية ما يبرّر تقسيم النوع إلى وحدات تصنيفية إضافية، عدا السلالة الصومالية الوحيدة4.

يُعترف حالياً بسلالتين: B. a. arietans في عموم أفريقيا جنوب الصحراء، وB. a. somalica المحصورة في القرن الأفريقي والمُشخَّصة بناءً على بنية الحراشف تحت الذيلية وحدها6.

الصورة الوراثية أعقد من الصورة الشكلية. ففي 2013، كشفت دراسة تسلسل جيني على مستوى أفريقيا عن فروع متعدّدة: فرع غرب أفريقي متميّز، وفرعين شرق أفريقيين، وفرع عربي متباعد، وفرع واسع في جنوب أفريقيا. ويُقدَّر أنّ السلالات الرئيسة تباعدت قبل مليون إلى خمسة ملايين سنة4. ويغري ذلك بأن يُقرأ على أنّه مجمّع أنواع، وقد وُصفت الأفعى النفاثة فعلاً على هذا النحو سنة 201022. غير أنّ الأمر يحتاج مزيداً من العمل للحسم فيه4. بل إنّ البحث التصنيفي هو البند الوحيد الذي يذكره تقييم الاتحاد الدولي لحفظ الطبيعة كحاجة لهذا النوع28.

أما بخصوص التجمّع المعزول في المغرب، فلا يُعرف تقريباً شيء عن كيفية تصنيفه بالنسبة إلى التجمعات الأخرى، إذ لم يُسلسَل سوى فرد واحد في دراسة 2013 الأفريقية4. ويبقى معلّقاً ما إذا كان المُتبقّي المغربي متميّزاً وراثياً، ومنذ متى هو معزول. وستكون للإجابة الدقيقة أهمية طبية وتصنيفية معاً، لأنّ تركيب السُمّ يتباين بين التجمعات9.

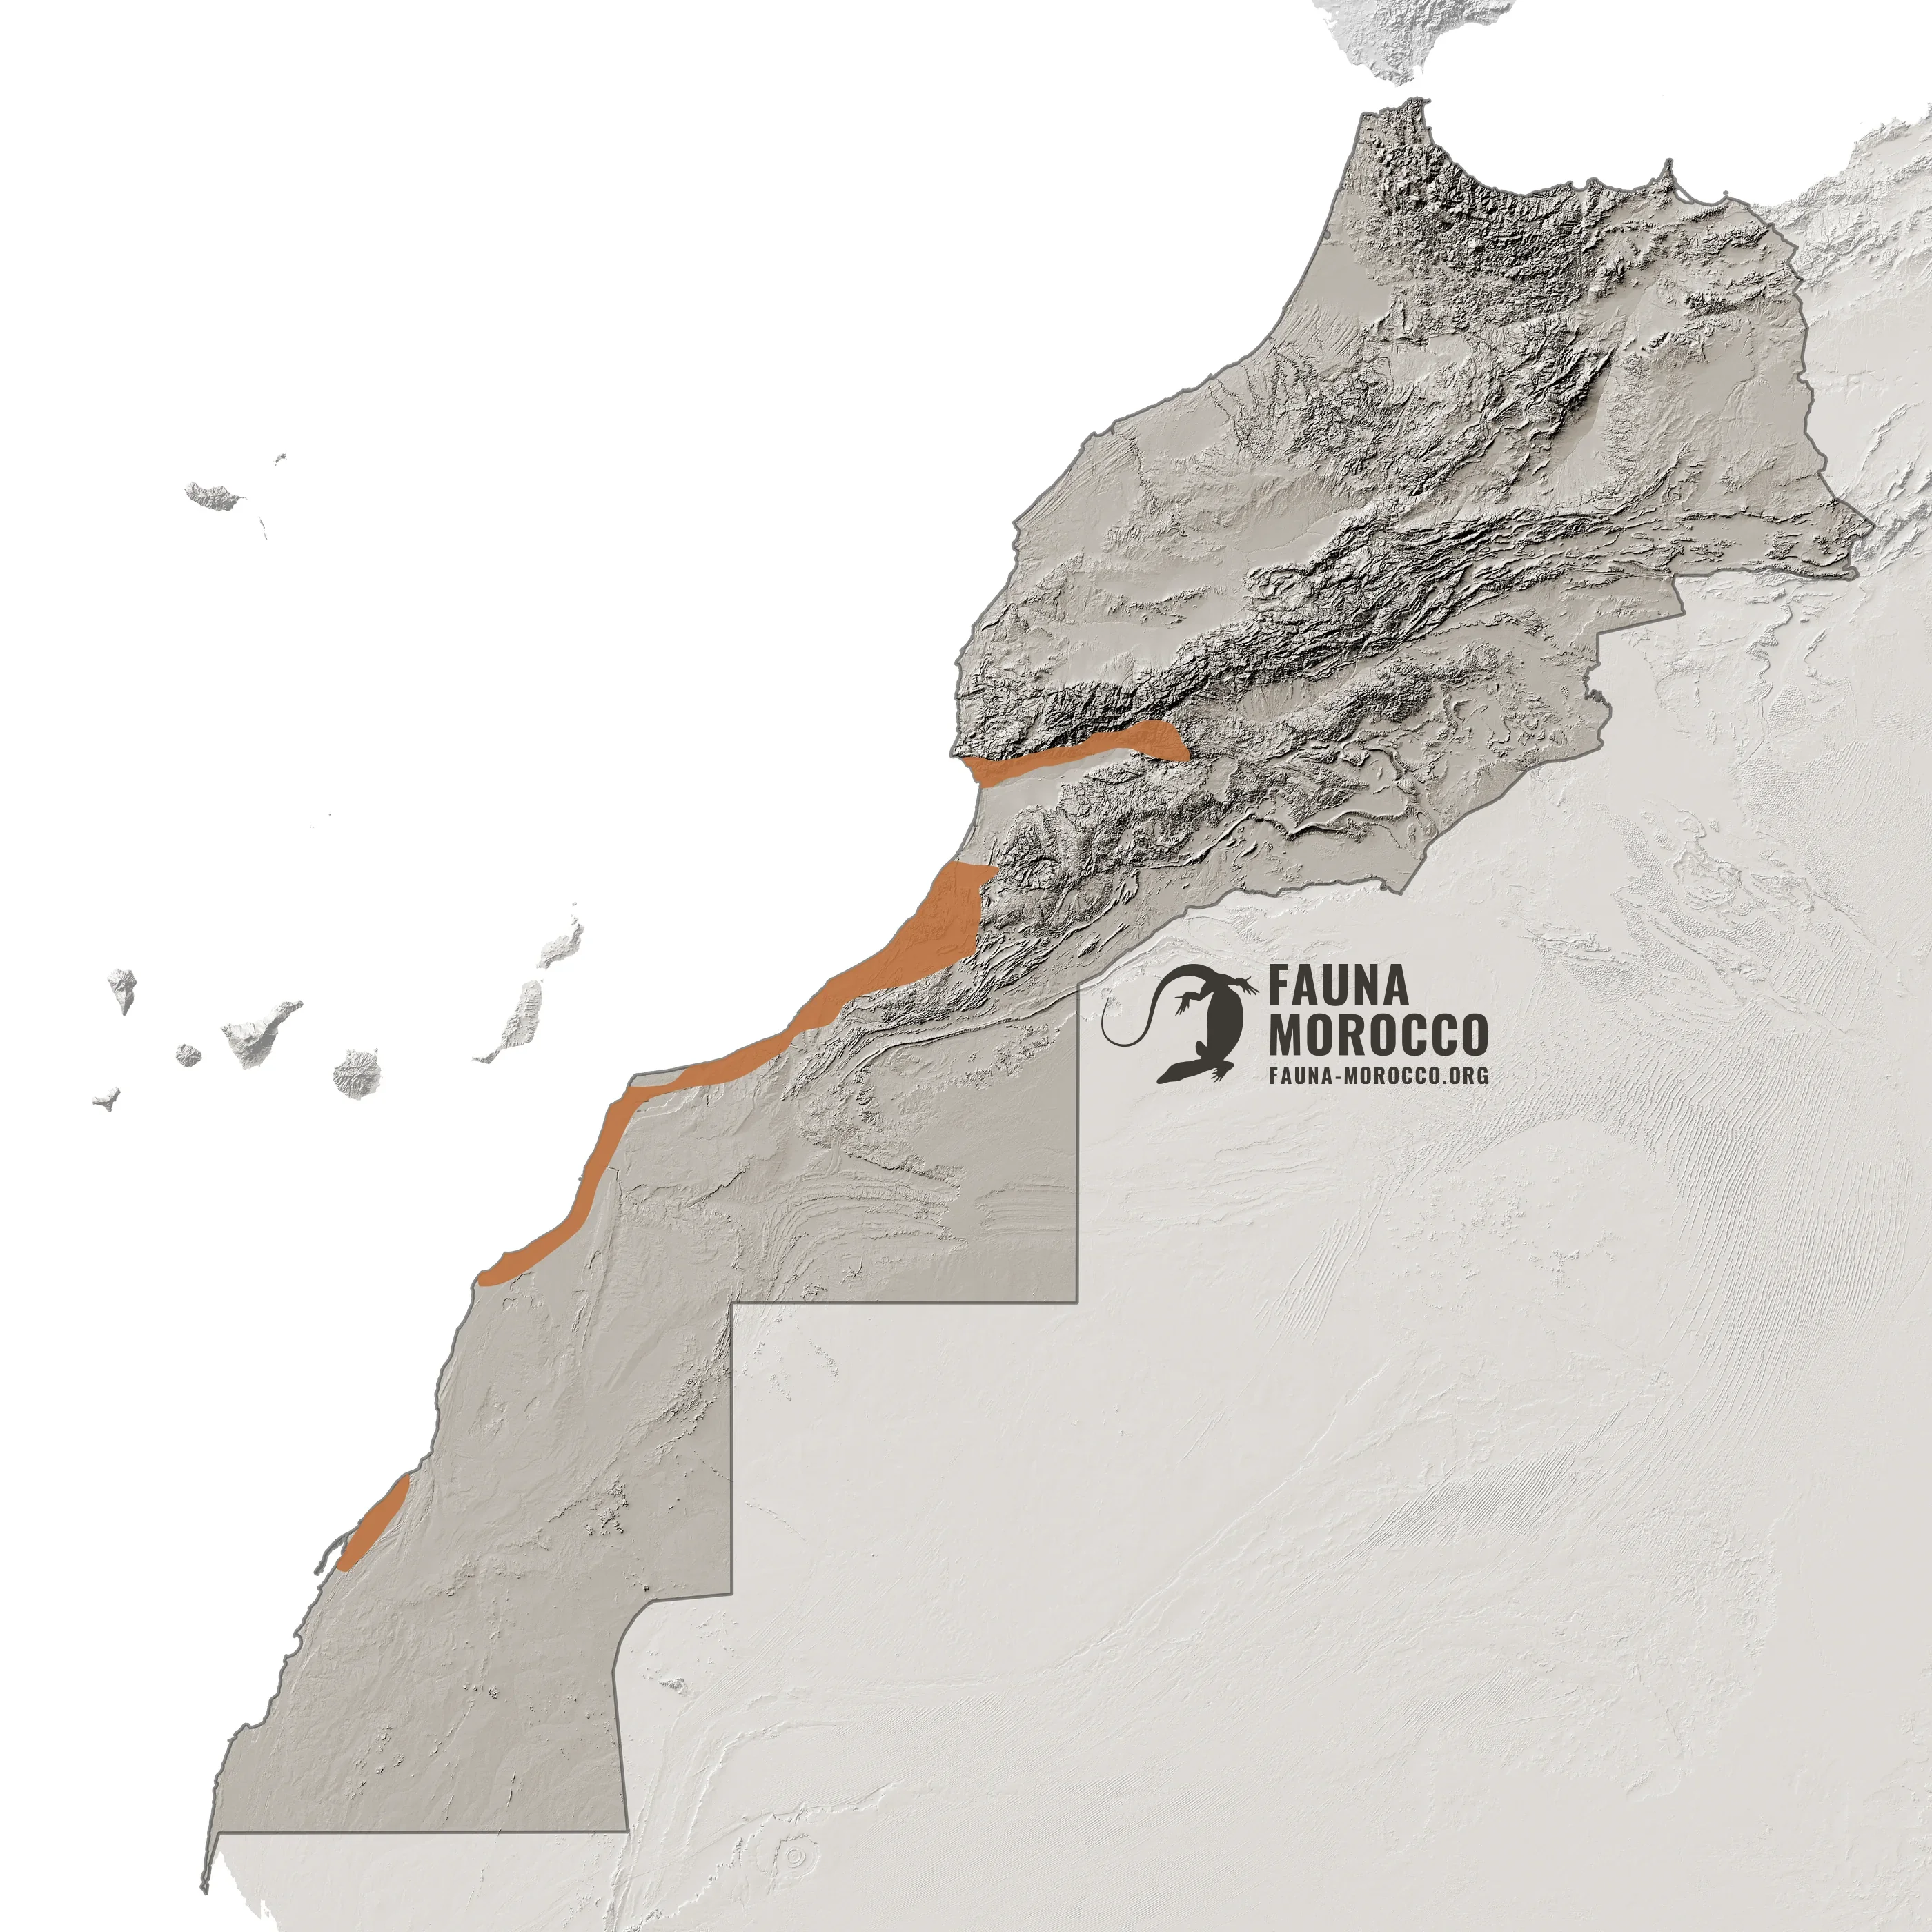
الأفعى النفاثة (Bitis arietans) من أوسع الثعابين انتشاراً في أفريقيا، من السنغال إلى الصومال وجنوباً حتى جنوب أفريقيا، وتمتدّ على جزء كبير من جنوب غرب شبه الجزيرة العربية. وعالمياً سُجِّلت من قرب مستوى سطح البحر حتى 3500 م. ويشكّل شمال غرب أفريقيا استثناءً: فالانتشار هناك مُتبقٍّ، إذ لا يبقى النوع إلا كتجمّع فرعي معزول في جنوب غرب المغرب28. وهذا الحدّ الشمالي مردّه الأرجح إلى المناخ لا إلى الموئل، إذ تمتدّ أراضٍ تبدو مناسبة على طول الساحل الأطلسي دون أن يتبعها الثعبان. وتوحي هذه الحساسية نفسها بأنّ التقلّبات المناخية الماضية أثّرت بشدّة في التجمّع المغربي4.

في المغرب، كان النوع حاضراً في سهل سوس وعلى الشريط الأطلسي الجنوبي، من تالوين شمالاً إلى الداخلة جنوباً528، على مدى يمتدّ من مستوى سطح البحر إلى نحو 1000 م20. أما انتشاره في المغرب اليوم فالأرجح أنّه أضيق بكثير، ومتركّز أساساً حول المنطقة الواقعة بين سيدي إفني وكلميم (تواصل شخصي). وقد كشفت حملة مسح دامت عشرة أيام في أكتوبر 2019 عن ثلاثة مواقع جديدة، لكنّها جميعاً على بُعد كيلومترات قليلة من مواضع منشورة سابقاً، فسدّت ثغرات بدل أن توسّع النطاق10. وخلال حملاتنا (2024–2026) زرنا مراراً مناطق كانت مأهولة بكثافة، مثل الوطية20. وقد عُثر على سلخ في المنطقة، لكن لم يُشاهَد أيّ حيوان حيّ رغم مسوحات جرت عدّة ليالٍ وفي أشهر مختلفة (ملاحظة شخصية)، ما يوحي بانخفاض حادّ جداً في الوفرة على الأقل.

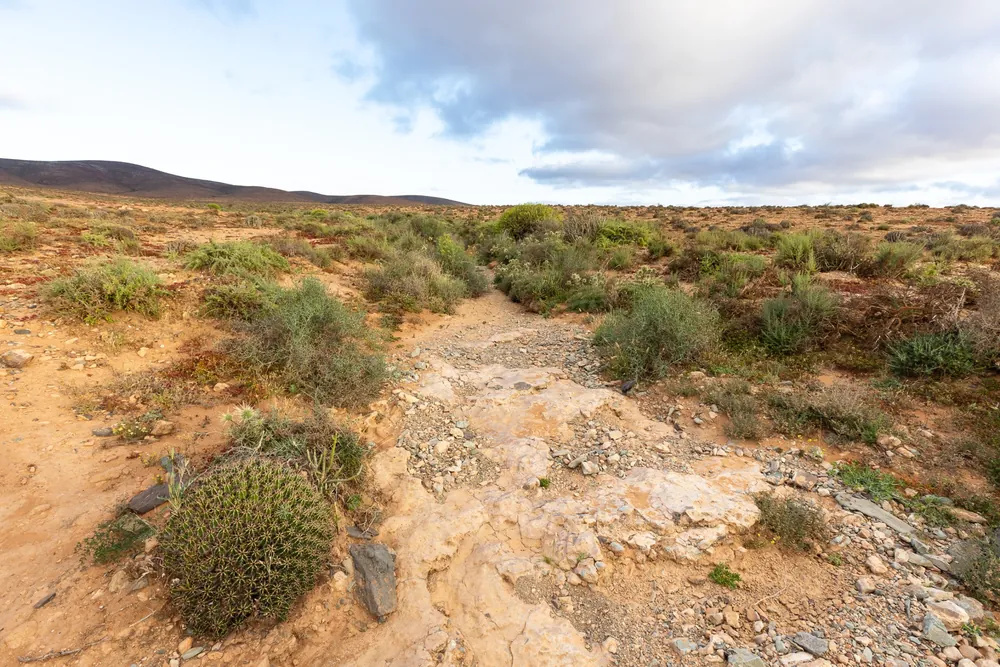
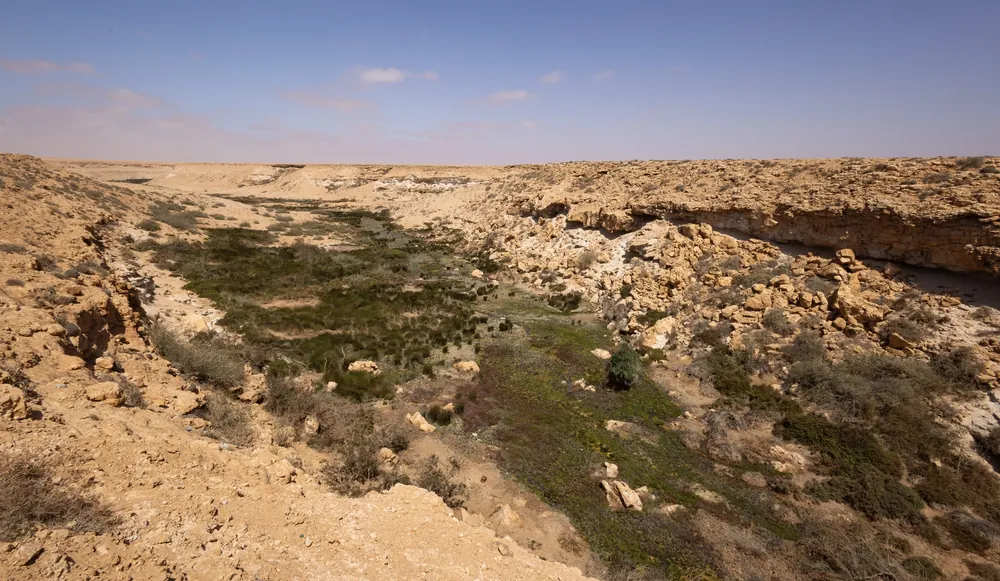
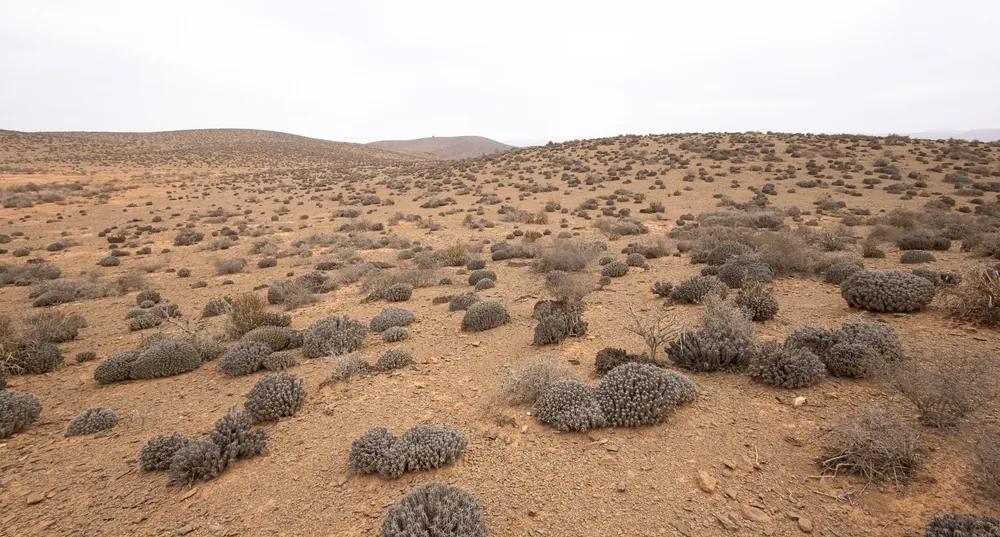
الأفعى النفاثة نوع سافانا وساحل أكثر منها نوع صحراء، مع تفضيل واضح للأراضي التي يبقى فيها المدى الحراري السنوي دون 25° مئوية تقريباً7. تتواجد في مناطق مفتوحة مشمسة قليلة الغطاء النباتي، وموئلها المفضّل سهوب واسعة ذات تربة رملية مفكّكة وكثافة عالية من جحور الثدييات. وعلى امتداد الشريط الساحلي تستغلّ أيضاً محيط المجاري المائية والأراضي الصخرية، لكن بصفة ثانوية192028. كما يُذكر أنّ الأفعى النفاثة قد توجد في غابات الأركان28.

والارتباط بالثدييات الحفّارة هو أوضح إشارة موئلية في الأدبيات المغربية. فالنوع وثيق الصلة بمناطق التربة الهشّة حيث تحفر ثدييات صغيرة مستعمِرة شبكات جحور واسعة، وفيها يصطاد ويحتمي معاً20.

الأفعى النفاثة أرضية وتُعامَل عموماً على أنّها ليلية النشاط أساساً في المغرب18، لكن كثيراً ما توجد خارج ملجئها نهاراً، ساكنةً عند أصل شجيرة2010. وتتنقّل عادةً بحركة مستقيمة، موجة تجري على طول البطن. وتترك خلفها أثراً مستقيماً مميّزاً تنطبع فيه الحراشف البطنية فرادى20. وهذا الأثر الذي لا يُخطئه أحد يُيسّر على صيّادي الثعابين تتبّعه إلى مخبئه20 (ملاحظة شخصية).

لا يتبع نمط النشاط المغربي النموذج المتوسّطي المعتاد المتّسم براحة شتوية. فالأفعى النفاثة من الثعابين المغربية القليلة التي يمكن أن تنشط معظم السنة، بتسجيلات تمتدّ من فبراير إلى مايو ومن أغسطس إلى ديسمبر، ويبدو أنّ النشاط يتبع الأمطار لا الفصول19. ولا يُعرف إن كان يحدث سُبات شتوي حقيقي، لكن حرارة أبرد الأشهر تحدّ بوضوح من النشاط، مع أنّ معظم النطاق المغربي يعرف شتاءً معتدلاً أو دافئاً20. والحيوانات في جنوب أفريقيا لا تدخل هي الأخرى في سُبات: ففي أبرد الأشهر تبقى ببساطة خاملة على السطح أو في الجحور أو تحت الصخور15، وهو الأرجح في قراءة الشتاء المغربي أيضاً.

دُرِس غذاء الأفعى النفاثة جيداً في جنوب أفريقيا، بتسجيل فيديو لحيوانات برّية. وقد وُثِّقت الثدييات كفريسة في 40% من حالات التغذّي والبرمائيات في 42%15. وأيّاً كان حجمها، كانت الأفاعي النفاثة تتغذّى على الثدييات والبرمائيات والسحالي. ومن ثمّ لا يُلاحَظ أيّ تحوّل تطوّري (اختلاف في الغذاء بين الصغار والبالغين) من الفرائس بطيئة الأيض إلى ذوات الدم الحارّ. والطيور وحدها، وهي جزء ضئيل من الغذاء، كانت مقصورة على البالغين15.

لم تُجرَ أيّ دراسة كاملة للغذاء على الأفعى النفاثة (Bitis arietans) في المغرب. وتذكر الملاحظات المتاحة ثدييات وزواحف وطيوراً273. وترتبط التجمعات المغربية ارتباطاً وثيقاً بمستعمرات القوارض الحفّارة التي يُفترض أنّها تؤمّن جُلّ غذائها20. ويبقى نوع الثديّي الذي يشكّل الفريسة الرئيسة غير محسوم. يعيش قارضان في الموئل نفسه مع الأفعى النفاثة: السنجاب البربري (Atlantoxerus getulus) وجرذ الرمال (Psammomys obesus) ‏20. غير أنّ السنجاب البربري يشغل أساساً أرضاً صخرية، بينما يحتاج جرذ الرمال إلى تربة مفكّكة ليحفر شبكات جِحاره، ويوجد في السهوب والمناطق الرملية10. ولمّا كانت الأفعى النفاثة نفسها نوعاً من التربة الرملية المفكّكة، فإنّ جرذ الرمال هو القارض الأنسب موئلاً للثعبان، فضلاً عن أنّه يُذكر وفيراً في نطاق كلميم إلى وادي درعة7. والسنجاب البربري ليس مستبعَداً10، لكنّه الأقلّ ترجيحاً بين الاثنين كفريسة أساسية.

بنظام غذائي من القوارض، على الأفعى النفاثة أن تبتلع نحو ثُلثَي وزنها سنوياً للحفاظ على كتلتها2. وإذا توافرت الفرائس بكثرة، أمكن لهذا الثعبان أن يأكل نحو اثنَي عشر ضعف وزنه في السنة، مكوّناً احتياطياً دهنياً كبيراً2.

تصطاد الأفعى النفاثة بالكمين، ساكنةً بجانب نبات منخفض أو عند مدخل جُحر. ويمكنها أيضاً استدراج الفرائس: يُلوَّح بالذيل بينما يُبقى اللسان ممدوداً نحو ثماني ثوانٍ في المرّة، مقابل نصف ثانية لخفقة لسان عادية، بحيث يشبه الاثنان ديداناً صغيرة. وقد استُخدم هذا الاستدراج اللساني في 37.5% من اللقاءات مع البرمائيات دون سواها من الفرائس، ما يبيّن أنّ الثعبان يميّز بين أنواع الفرائس قبل الاستدراج13. وحين تدنو الفريسة في المتناول، ينقضّ الثعبان. أما الفرائس الكبيرة أو الخطيرة فتُطلَق فوراً وتُقتفى بعد أن يفعل السُمّ فعله، في حين تُمسَك الصغيرة وتُبلَع بسرعة20. ويمكن للأفعى النفاثة أن تصوم حتى سنتين معتمدةً على مخزونها2.

وقد قاست القياسات اللاسلكية والتصوير المتواصل في جنوب أفريقيا مدى اقتصاد هذا الثعبان في عيشه. فالحيوانات كانت تمضي نحو عشر ساعات يومياً في الكمين، غالباً ليلاً، وتلتقي فريسة مرّة كلّ يومين ونصف، وتنقضّ على أقلّ من ثلث ما تلتقيه من فرائس، وتتغذّى وسطياً مرّة كلّ عشرة أيام على فرائس يبلغ متوسط وزنها 32 غراماً. وعلى مدى موسم صيد، يأخذ الذكر البالغ ما يُقدَّر باثنتَي عشرة إلى خمس عشرة فريسة، أي نحو نصف كتلته14. وأظهر التغذية الإضافية أنّ هذا السلوك ليس سلبياً: فالثعابين جيّدة التغذية كانت تقضي وقتاً أقلّ في الكمين وتقطع مسافات أقصر، بينما كانت الحيوانات ناقصة التغذية تجول أبعد. ومن ثمّ يُوصَف هذا الثعبان بأنّه صيّاد كمين متنقّل أكثر منه مفترساً جالساً بالكامل14.

ضغط الافتراس شديد حيث قِيس: فأنواع ثعابين أخرى كالكوبرا، وثدييات كالنمس والغُرَير العسلي والقطط والكلاب البرّية، من مفترسات الأفعى النفاثة المعروفة في نطاقها21. وقد بلغت النجاة السنوية المقدَّرة في تجمّع مدروس بجنوب أفريقيا 43 إلى 58% للذكور البالغين، و50 إلى 63% للإناث، أي أنّ نحو نصف الحيوانات المرصودة كانت تنفق كلّ سنة21. ومن ثمّ فالأرجح أنّ نسبة ضئيلة جداً من المواليد تبلغ سنّ البلوغ.

وكانت الحيوانات المتتبَّعة تنتقل دوماً إلى مربض جديد بعد الانسلاخ، وتتغوّط عادةً في موضع الانسلاخ قبل مغادرته، فتتركها في مكان مهجور كي لا تفضحها الرائحة21.

التمويه هو خطّ الدفاع الأول والأهمّ بلا منازع، وهو عند هذا النوع شمّي وبصري معاً. فقد كانت الكلاب والسُّرَيقات المدرَّبة على تمييز روائح الثعابين تكشف الأنواع الأخرى بدقّة لكنّها تعجز عن كشف الأفاعي النفاثة. والكلاب نفسها كانت تجد سلخ الأفعى النفاثة بدقّة 84%. فالأفعى إذاً تُخفي رائحتها فعلياً. ويبقى هذا حتى اليوم أول إثبات لتمويه كيميائي بوصفه صفة مضادّة للافتراس عند فقاري برّي. ونتيجةً لذلك، لا تُبدي القوارض الملامسة لثعبان كامن أيّ علامة على انتباهها إليه21. والنتيجة السلوكية أنّ الأفعى النفاثة، إذ تواجه تهديداً يقترب، تبقى مكانها معتمدةً على تمويهها بدل أن تفرّ (ملاحظة شخصية). وعموماً، فالبقاء ساكناً هو ما يُبقي الأفعى النفاثة حيّة، لأنّ المسافة المقطوعة ترتبط ارتباطاً وثيقاً بخطر الوفاة1.

وإذا أُزعج الحيوان، بدأ الفحيح العالي الذي منه اسم النوع وحاول الانسحاب في آنٍ. وإن استمرّ الإزعاج ولم يردع الفحيحُ الدخيل، تحلّق واتّخذ وضعية دفاعية مهيبة قبل أن يقذف رأسه إلى الأمام ليعضّ. وتُوجَّه هذه الضربات بعنف يجعل الثعبان ينقلب أحياناً انقلاباً كاملاً، ولا سيّما في الصغار خفيفة الجسم20.

والضربة نفسها لافتة لحيوان بهذه البنية. فالتصوير فائق السرعة يعطي سرعة نهائية وسطية قدرها 21 كم/س على مسافة 20 سم فقط. وهذه أرقام مرتفعة جداً لثعبان بهذا الثقل. والعضلات التي تبسط الجسم تنشط كهربائياً قبل الضربة وتصمت أثناءها، ما يدلّ على أنّ الحركة مدفوعة بارتداد مرن للعضلات والأوتار المشحونة لا بانقباض مباشر، وهو تضخيم للقدرة يبدو أنّه ما يتيح لثعبان يزن عدّة كيلوغرامات أن يتسارع بهذا الشكل29. ولم توصَف أيّ مرحلة عضّة جافّة لهذا النوع، ولا يُفترَض وجودها هنا.

تُصنّف الأفعى النفاثة (Bitis arietans) لدى منظمة الصحة العالمية في الفئة 1، وهي الفئة المخصّصة للثعابين التي تسبّب عضّاتها مستويات عالية من الوفاة أو العجز16. وعبر أفريقيا تُحمَّل مسؤولية جزء كبير من العضّات الخطيرة، وهو أثر مؤسف لعادتها في البقاء مكانها عند الاقتراب واستعدادها للضرب17.

وفي المغرب هي إحدى الأفاعي الأربع ذات الأهمية الطبية، إلى جانب الأفعى الموريطانية (Daboia mauritanica) والأفعى القرناء (Cerastes cerastes) ‏16 والأفعى ذات البطن الأبيض (Echis leucogaster) (تواصل شخصي). وتمثّل الأفاعي 67.2% من حالات التسمّم الشديد في البلاد، والأفعى النفاثة 10.9% من الحالات، بحصّة تماثل الأفعى القرناء، لكنّها دون الأفعى الموريطانية بكثير16.

لم يُوصَف سُمّ الأفعى النفاثة المغربية إلا حديثاً. وهو يُحدث تورّماً موضعياً شديداً وأضراراً نسيجية بالغة، مع نخر واسع في الألياف العضلية. وهو في المقابل ضعيف النزف فحسب16. ولم تُحدَّد البروتينات المسؤولة، إذ لا وجود لأيّ تحليل بروتيني لسُمّ الأفعى النفاثة المغربية16.

والوضع العلاجي من الأسوأ بين كلّ ثعابين المغرب. فمضاد السُمّ الوحيد المتوافر في البلاد، Inoserp-MENA، أخفق تماماً في حماية حيوانات التجربة من الآثار المميتة لسُمّ الأفعى النفاثة المغربية، حتى عند أعلى جرعة اختُبرت. ووُصفت حمايته من التورّم بأنّها تكاد تكون معدومة، وحمايته من الأضرار النسيجية بأنّها ضعيفة. ومن ثمّ تشتدّ الحاجة إلى مضاد سُمّ خاصّ بالمنطقة16. والنتيجة العملية لنطاق كلميم إلى طرفاية أنّ العضّة الخطيرة حالة طوارئ طبية قد يكون علاجها المتوافر شبه عديم الجدوى.

الأفعى النفاثة وَلود، تلد صغاراً أحياء. ويتراوح حجم الحضنة بين 20 و60 مولوداً ويتباين جغرافياً، مع 20 إلى 40 في الغالب. غير أنّه سُجِّل لأنثى أن ولدت 156 صغيراً26. والمواليد صغيرة قياساً إلى حجم الإناث، ويبلغ متوسط وزنها 12 غراماً (أرقام من جنوب أفريقيا)15.

أما حجم المواليد وسنّ البلوغ وتوقيت التكاثر وتواتره فغير موثّقة في المغرب. غير أنّ معظم البالغين الذين يوجدون نافقين أو عابرين للطرق يكونون بين أواخر فبراير وأواخر مايو، وهو ما يوافق على الأرجح فترة التزاوج20.

لم تتناول أيّ دراسة جادّة طول عمر الأفعى النفاثة في البرّية. وقد سُجِّل حدّ أقصى يناهز 16 سنة في الأسر25. وابنتا عمّها الغابيّتان، أفعى الغابون (Bitis gabonica) وأفعى وحيدة القرن (Bitis nasicornis)، تظهران عمراً قدره 18 و9.4 سنة على التوالي25. ومن ثمّ فإنّ طول عمر أقصى قدره 15 سنة رقم عملي معقول للأفاعي النفاثة المغربية. غير أنّ معظم العيّنات لا تقارب هذا العمر أبداً. فللأفاعي النفاثة البالغة نحو 50% احتمال نفوق كلّ سنة من حياتها21، بحيث يعيش معظم الأفراد دون عقد بكثير. وفي المغرب، يُضاف ارتفاع النفوق على الطرق والجمع الموجَّه للثعابين الكبيرة إلى الافتراس الطبيعي، فيقلّص أكثر العمر المُتحقَّق فعلاً في البرّية.

عالمياً، تُقيَّم الأفعى النفاثة على أنّها غير مُهدَّدة بتعداد مستقرّ لدى الاتحاد الدولي لحفظ الطبيعة، استناداً إلى انتشار واسع في أفريقيا وغياب تهديدات واسعة النطاق. ويخلص التقييم إلى أنّه لا حاجة إلى تدابير حفظ مباشرة. غير أنّ النوع نادر جداً في المغرب ويُجمَع بكثافة لأجل ترويض الثعابين28.

وعلى المستوى الوطني، صُنِّفت الأفعى النفاثة مُعرَّضةً للخطر، إذ تقلّص تعدادها بفعل الاستغلال وتدهور جودة الموئل23. والسجلّ المنشور متناقض بشأن ندرة الأفعى النفاثة في المغرب. فالاتحاد الدولي لحفظ الطبيعة يعدّها نادرة جداً28، بينما تصفها شهادات ميدانية من نطاق كلميم إلى طانطان بأنّها وفيرة جداً داخل نطاقها المغربي1920، لكنّ الأمرين لا يتساويان. فالشهادات الميدانية تعود إلى 2012 و2020 وتصف كثافة محلية داخل نطاق صغير. وتقييم الندرة هو ما يتقاسمه اليوم العاملون على النوع في البلاد. ويجري حالياً إعداد مشروع حفظ للتجمّع المغربي من قِبل فريق دولي بقيادة Morocco Herpetology (A. Bouazza، تواصل شخصي).

وتضغط ثلاثة عوامل على التجمّع المغربي.

  • الجمع لأجل ترويض الثعابين: هذا هو التهديد الأفضل توثيقاً في المغرب. فالأفعى النفاثة هي أكثر ثعابين البلاد استغلالاً على الإطلاق. وقُدِّر أنّ صيّادي الثعابين (عيساوة) يستخرجون من البرّية 1010 أفاعٍ نفاثة سنوياً، أكثر من أيّ نوع آخر. ويبلغ نحو 780 منها المروّضين، ويُعزى الفارق إلى النفوق أثناء النقل والأسر، وإلى الاتّجار غير المشروع، وإلى البيع لمختبرات مضادّات السُمّ. وهي، مع الكوبرا المصرية (Naja haje)، أحد النوعين اللذين تقوم عليهما هذه التجارة، وقد انتقلت مناطق الصيد نحو 96 كم أبعد جنوباً غرباً بين 1989 و2014، بما يتّسق مع تراجع محلي قويّ لهذين النوعين24. والاستخراج شديد الانتقائية بحسب الحجم: فالأفاعي النفاثة لدى المروّضين بلغ متوسط طولها 85 سم من الخطم إلى المجمع، مقابل 54 سم للحيوانات التي وُجدت في مواقع الجمع نفسها ببحث غير موجَّه. وكان تناسب الجنسين في الحيوانات المستخرَجة متوازناً، ما يعني أنّ الإناث الحوامل لا تُطلَق فعلاً، خلافاً لما يزعم الصيّادون24. وإزالة أكبر الإناث من نوع وَلود يزداد إنتاجه التكاثري مع الحجم هي أشدّ أشكال الاستخراج ضرراً على الإطلاق. وكثيراً ما يبلّغ الناس عن الحيوانات التي تُصادَف قرب المساكن مروّضي الثعابين المحليين، فيأتون لجمعها طوعاً (تواصل شخصي).
  • النفوق على الطرق: النوع بطيء ومتأنٍّ في تنقّله، ويبقى على الأسفلت الدافئ ليلاً، وهو مزيج يجعله بالغ التعرّض20. ويُتوقَّع أن تسبّب شبكة الطرق المتوسّعة في جنوب غرب المغرب فقداناً مباشراً للموئل ونفوقاً على الطرق7.
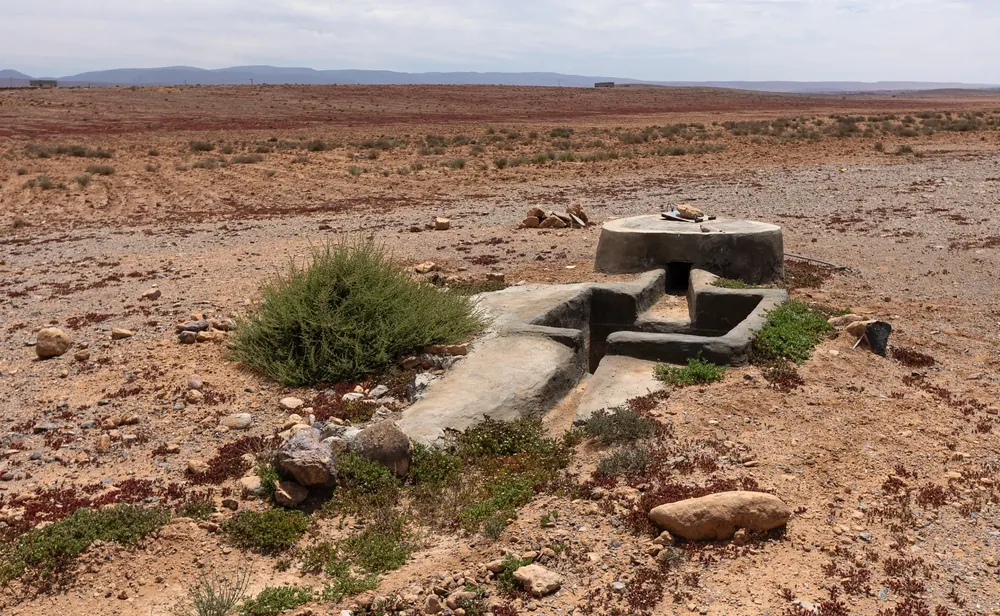
  • الآبار والصهاريج وأحواض الماء الأخرى: تعمل هذه المنشآت كمصائد سقوط في عموم المغرب القاحل، وهي سبب رئيس لنفوق الزواحف والبرمائيات عامّةً1211.

وبالنسبة لنوع مُتبقٍّ نادر معزول هامشي، خاضع لأثقل جمع للثعابين في البلاد، ومهدَّد بالاحترار وتراجع الأمطار المتوقَّعين في المنطقة7، يبدو التصنيف الوطني في خانة «مُعرَّض للخطر» متحفّظاً لا مُبالِغاً.

  1. Alexander, G. J., & Maritz, B. (2011). Predation risk in relation to behaviour in Bitis arietans: Does it pay to keep your head down? [Conference abstract]. In 10th Herpetological Association of Africa Conference, 11–14 January 2011, Cape Town, South Africa (p. 8). Herpetological Association of Africa, via Miller et al. (2015).
  2. Alexander, G.J. (2025) Factorial scope of ingestion and the potential functional response of puff adders (Bitis arietans) to high prey abundance. Sci Rep 15, 16579 . https://doi.org/10.1038/s41598-025-99550-3
  3. Aymerich, M. (2011). Vipère heurtante (Bitis arietans). In L. Mahraoui, M. Aymerich, E. Borof-Aymerich, M. Tarrier, J. Delacre, & L. Marseault (Founders), Groupe d'Étude et de Recherches des Écologistes Sahariens. www.geres-asso.org, via Martínez del Mármol Marín (2012).
  4. Barlow, A., Baker, K., Hendry, C. R., Peppin, L., Phelps, T., Tolley, K. A., Wüster, C. E., & Wüster, W. (2013). Phylogeography of the widespread African puff adder (Bitis arietans) reveals multiple Pleistocene refugia in southern Africa. Molecular Ecology, 22(4), 1134–1157. https://doi.org/10.1111/mec.12157
  5. Bons, J., & Geniez, P. (1996). Amphibiens et reptiles du Maroc (Sahara Occidental compris). Atlas biogéographique. Asociación Herpetológica Española, via Martínez del Mármol Marín (2012).
  6. Branch, W. R. (1999). Bitis arietans peghullae Stewart 1973 (Serpentes: Viperidae): A valid race of puff adder? African Journal of Herpetology, 48(1–2), 15–19, via Barlow et al. (2013).
  7. Brito, J. C., Fahd, S., Geniez, P., Martínez-Freiría, F., Pleguezuelos, J. M., & Trape, J.-F. (2011). Biogeography and conservation of viperids from North-West Africa: An application of ecological niche-based models and GIS. Journal of Arid Environments, 75(11), 1029–1037. https://doi.org/10.1016/j.jaridenv.2011.06.006
  8. Cundall, D. (2009). Viper fangs: Functional limitations of extreme teeth. Physiological and Biochemical Zoology, 82(1), 63–79, via Young (2010).
  9. Dawson CA, Bartlett KE, Wilkinson MC, Ainsworth S, Albulescu LO, Kazandijan T, Hall SR, Westhorpe A, Clare R, Wagstaff S, Modahl CM, Harrison RA, Casewell NR (2024). Intraspecific venom variation in the medically important puff adder (Bitis arietans): Comparative venom gland transcriptomics, in vitro venom activity and immunological recognition by antivenom. PLoS Negl Trop Dis.; 18(10):e0012570. doi: 10.1371/journal.pntd.0012570. PMID: 39423239; PMCID: PMC11524477.
  10. Dyugmedzhiev, A., Andonov, K., Todorov, V., Martínez del Mármol, G., & Stanchev, N. (2022). A possible case of syntopy between Bitis arietans and Daboia mauritanica based on new reptile localities in southwestern Morocco. Herpetology Notes, 15, 33–46.
  11. García-Cardenete, L., Flores-Stols, M. V., & Yubero, S. (2017). New cases of syntopy between viperid snakes (Viperidae) in the Atlantic Sahara. Go-South Bulletin, 14, 139–141.
  12. García-Cardenete, L., Pleguezuelos, J. M., Brito, J. C., Jiménez-Cazalla, F., Pérez-García, M. T., & Santos, X. (2014). Water cisterns as death traps for amphibians and reptiles in arid environments. Environmental Conservation, 41(4), 341–349.
  13. Glaudas, X., & Alexander, G. J. (2017a). A lure at both ends: Aggressive visual mimicry signals and prey-specific luring behaviour in an ambush-foraging snake. Behavioral Ecology and Sociobiology, 71(1), Article 2. https://doi.org/10.1007/s00265-016-2244-6
  14. Glaudas, X., & Alexander, G. J. (2017b). Food supplementation affects the foraging ecology of a low-energy, ambush-foraging snake. Behavioral Ecology and Sociobiology, 71(1), Article 5. https://doi.org/10.1007/s00265-016-2239-3
  15. Glaudas, X., Kearney, T. C., & Alexander, G. J. (2017). Museum specimens bias measures of snake diet: A case study using the ambush-foraging puff adder (Bitis arietans). Herpetologica, 73(2), 121–128. https://doi.org/10.1655/HERPETOLOGICA-D-16-00055
  16. Khourcha, S., Hilal, I., Elbejjaj, I., Karkouri, M., Safi, A., Hmyene, A., & Oukkache, N. (2023). Insight into the toxicological and pathophysiological effects of Moroccan vipers' venom: Assessing the efficacy of commercial antivenom for neutralization. Tropical Medicine and Infectious Disease, 8(6), Article 302. https://doi.org/10.3390/tropicalmed8060302
  17. Mallow, D., Ludwig, D., & Nilson, G. (2003). True vipers: Natural history and toxinology of Old World vipers. Krieger Publishing Company, via Martínez del Mármol (2020).
  18. Martínez del Mármol, G., Harris, D. J., Geniez, P., de Pous, P., & Salvi, D. (2019). Amphibians and reptiles of Morocco. Edition Chimaira, via Martínez del Mármol (2020) and Dyugmedzhiev et al. (2022).
  19. Martínez del Mármol, G. (2020). The phenotypic variability of the genus Bitis Gray 1842, with remarks in its resemblance to other vipers. In G. Martínez, R. León, O. Jiménez-Robles, J. P. González De la Vega, V. Gabari, B. Rebollo, A. Sánchez-Tójar, J. R. Fernández-Cardenete, & J. Gállego (Eds.), Moroccoherps. Amphibians and reptiles of Morocco and Western Sahara. Version 05/04/2020. Retrieved 28 July 2026, from https://www.moroccoherps.com/en/bitis-article/
  20. Martínez del Mármol Marín, G. (2012). Bitis arietans (Merrem, 1820). In G. Martínez, R. León, O. Jiménez-Robles, J. P. González De la Vega, V. Gabari, B. Rebollo, A. Sánchez-Tójar, J. R. Fernández-Cardenete, & J. Gállego (Eds.), Moroccoherps. Anfibios y reptiles de Marruecos y Sahara Occidental. Version 18/10/2012. Retrieved 28 July 2026, from https://www.moroccoherps.com/ficha/bitis_arietans/
  21. Miller, A. K., Maritz, B., McKay, S., Glaudas, X., & Alexander, G. J. (2015). An ambusher's arsenal: Chemical crypsis in the puff adder (Bitis arietans). Proceedings of the Royal Society B: Biological Sciences, 282(1821), Article 20152182. https://doi.org/10.1098/rspb.2015.2182
  22. Phelps, T. (2010). Old World vipers: A natural history of the Azemiopinae and Viperinae. Edition Chimaira, via Martínez del Mármol Marín (2012).
  23. Pleguezuelos, J. M., Brito, J. C., Fahd, S., Feriche, M., Mateo, J. A., Moreno-Rueda, G., Reques, R., & Santos, X. (2010). Setting conservation priorities for the Moroccan herpetofauna: The utility of regional red lists. Oryx, 44(4), 501–508. https://doi.org/10.1017/S0030605310000992
  24. Pleguezuelos, J. M., Feriche, M., Brito, J. C., & Fahd, S. (2018). Snake charming and the exploitation of snakes in Morocco. Oryx, 52(2), 374–381. https://doi.org/10.1017/S0030605316000910
  25. Snider, A. T., & Bowler, J. K. (1992). Longevity of reptiles and amphibians in North American collections (2nd ed.). Society for the Study of Amphibians and Reptiles. Cited from AnAge: The Animal Ageing and Longevity Database, entries for Bitis arietans, Bitis gabonica and Bitis nasicornis. Retrieved 28 July 2026, from https://genomics.senescence.info/species/
  26. Spawls, S., & Branch, W. R. (1995). The dangerous snakes of Africa. Blandford, via Wagner et al. (2021).
  27. Trape, J.-F., & Mané, Y. (2006). Guide des serpents d'Afrique occidentale: Savane et désert. IRD Éditions, via Martínez del Mármol Marín (2012).
  28. Wagner, P., Wilms, T., Luiselli, L., Penner, J., Rödel, M.-O., Els, J., Al Johany, A. M. H., Egan, D. M., Beraducci, J., Howell, K., Msuya, C. A., Ngalason, W., Turner, A. A., Zassi-Boulou, A.-G., Kusamba, C., & Chippaux, J.-P. (2021). Bitis arietans. The IUCN Red List of Threatened Species 2021: e.T197461A2485974. https://dx.doi.org/10.2305/IUCN.UK.2021-3.RLTS.T197461A2485974.en Accessed on 28 July 2026.
  29. Young, B. A. (2010). How a heavy-bodied snake strikes quickly: High-power axial musculature in the puff adder (Bitis arietans). Journal of Experimental Zoology Part A: Ecological Genetics and Physiology, 313A(2), 114–121. https://doi.org/10.1002/jez.579

كيفية الاقتباس

Ruffieux, C., & Vuillemin, R. (2026). Puff Adder (Bitis arietans). In: Castella, C., Iallaten, H., Ruffieux, C., & Vuillemin, R. (Eds.), Fauna Morocco. The Free Encyclopedia: Reptiles & Amphibians of Morocco. Available from https://fauna-morocco.org/ar/encyclopedia/serpentes/viperidae/bitis-arietans.html (accessed 13 September 2026).

تاريخ النشر

13 سبتمبر 2026

آخر تحديث

21 سبتمبر 2026

المؤلفون

Colin Ruffieux
Rayane Vuillemin

المراجعون

Clément Castella
Haytam Iallaten
Mohamed Taha Aissaoui

التصوير

Rayane Vuillemin

المنهجية

كل بطاقة خلاصة علمية: نجمع الأدبيات، ونقرأ كل بحث كاملاً، ونتحقق من الحقائق من مصادرها الأصلية قدر الإمكان، ونُؤشّر على مواطن الشك لمراجعة الخبراء. تُكتب أولاً بالإنجليزية، ويراجعها الفريق، ثم تُترجَم إلى الفرنسية والعربية. كل معلومة موثّقة بمرجعها، وتُحدَّث البطاقات مع تقدّم المعرفة. إذا لاحظت خطأً أو نقصاً، يُرجى التواصل معنا لتصحيحه.