حنش الماء

حالة الحفظ:LCأقل تهديداً
اتجاه الأعداد:في تراجع
حنش الماء (Natrix maura)، المغرب

أينما وجد الماء في المغرب، من سيول الريف إلى آخر برك وادٍ على أطراف الصحراء، لا يكون حنش الماء بعيدًا. وهو غير مؤذٍ إطلاقًا، لكنه يتخذ هيئة الأفعى وسلوكها: فإذا حوصر فلطح رأسه والتفّ على نفسه وفحّ. ومثل كثير من الثعابين، كثيرًا ما يُقتل بمجرد رؤيته، ولا يزيد شبهه بالأفعى الأمر إلا سوءًا.

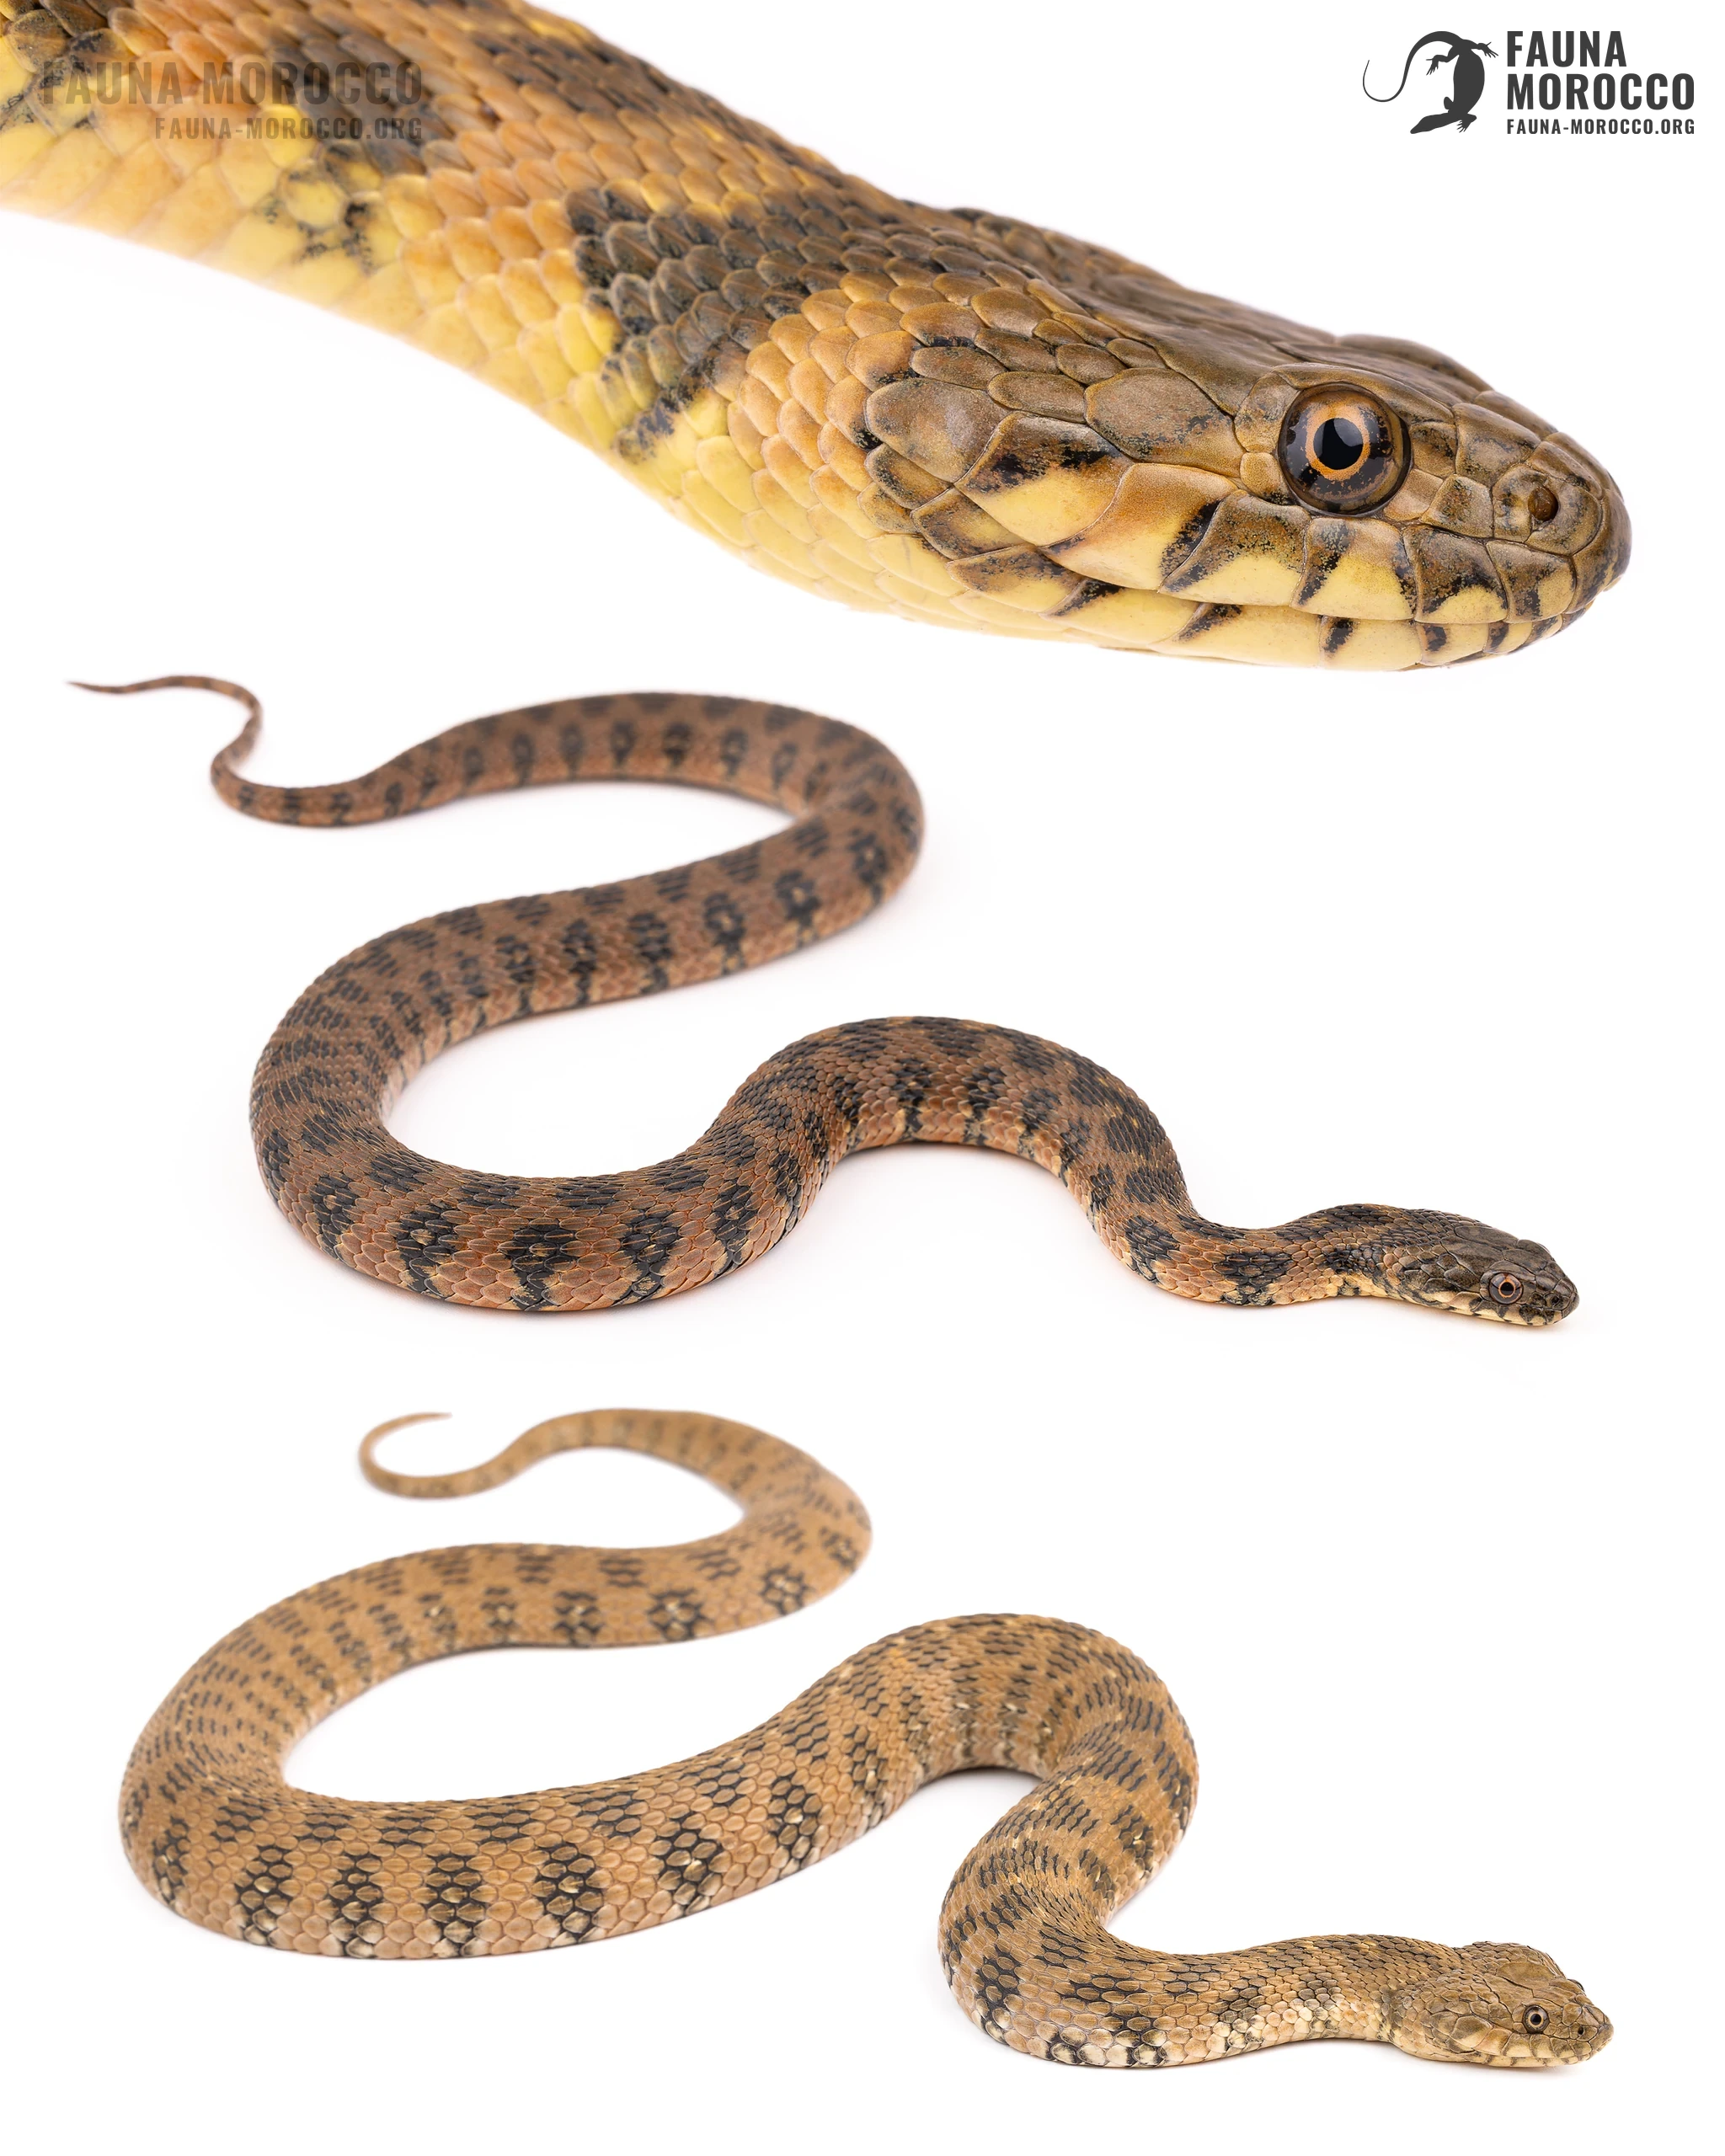
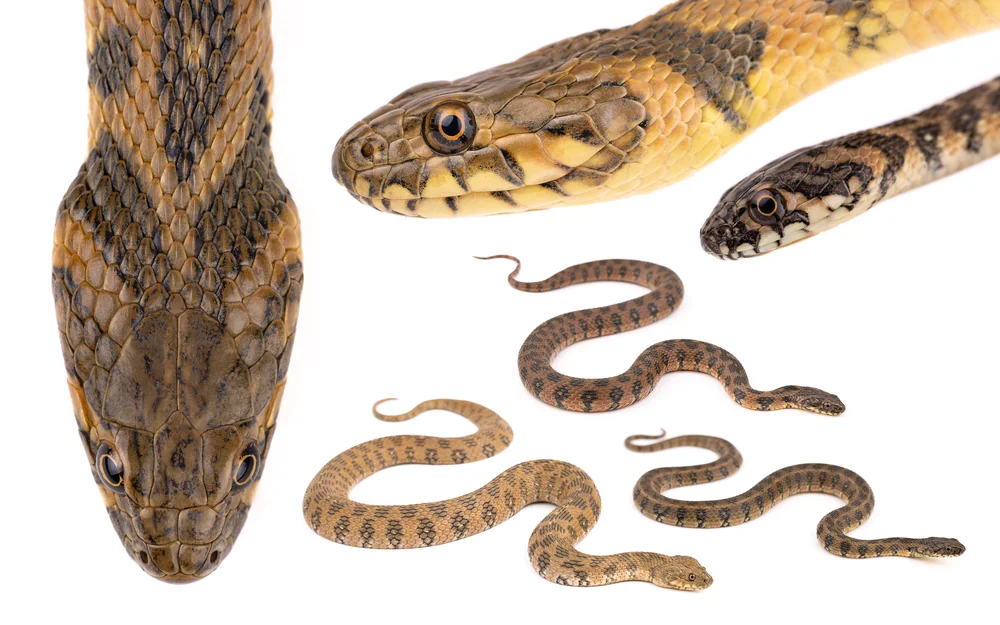
حنش الماء (Natrix maura) ثعبان مائي متوسط الحجم، ممتلئ الجسم، قصير الذيل، رأسه أعرض بوضوح من عنقه. ويبقى طوله الكلي في العادة دون متر واحد53. ويتبع حجم الجسم تدرّجًا حسب خط العرض، إذ تكبر الحيوانات الإفريقية أكثر من الإيبيرية4114. والإناث أكبر من الذكور. وفي عيّنة من الحيوانات المغربية بلغ أقصى طول كلي نحو 90 سم عند الإناث مقابل 54 سم عند الذكور5453.

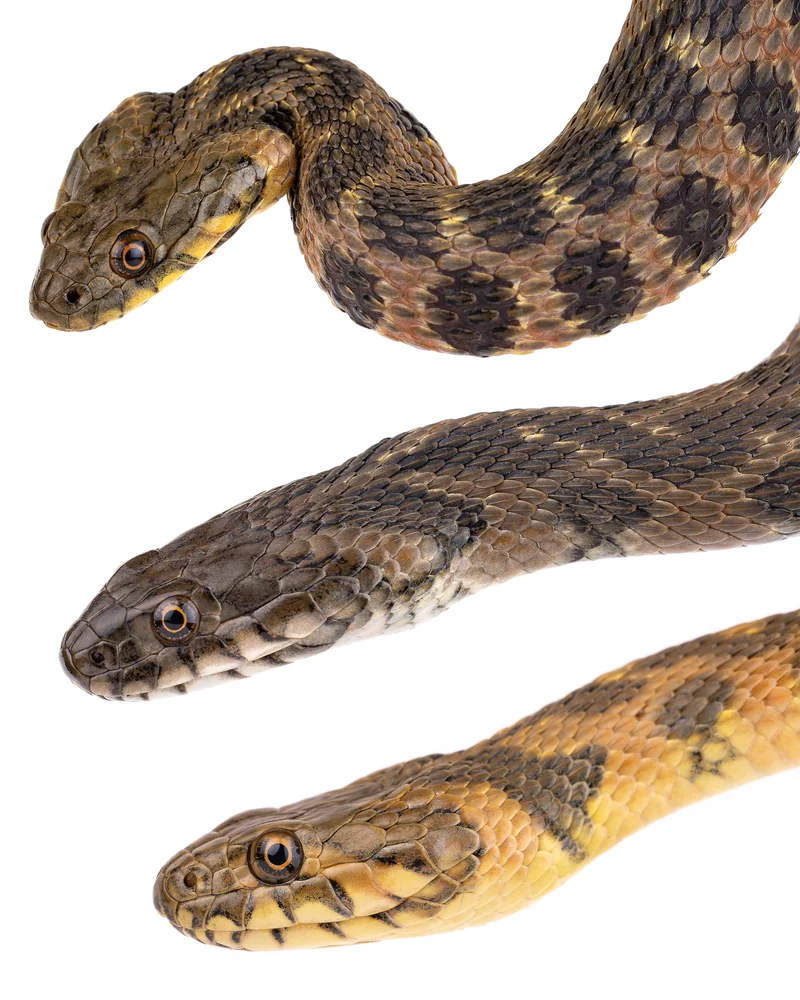
الحدقة مستديرة، والحافة الداخلية للقزحية محاطة بحلقة فاتحة53. وأسنانه غير مخدّدة، بلا أنياب سامة29.

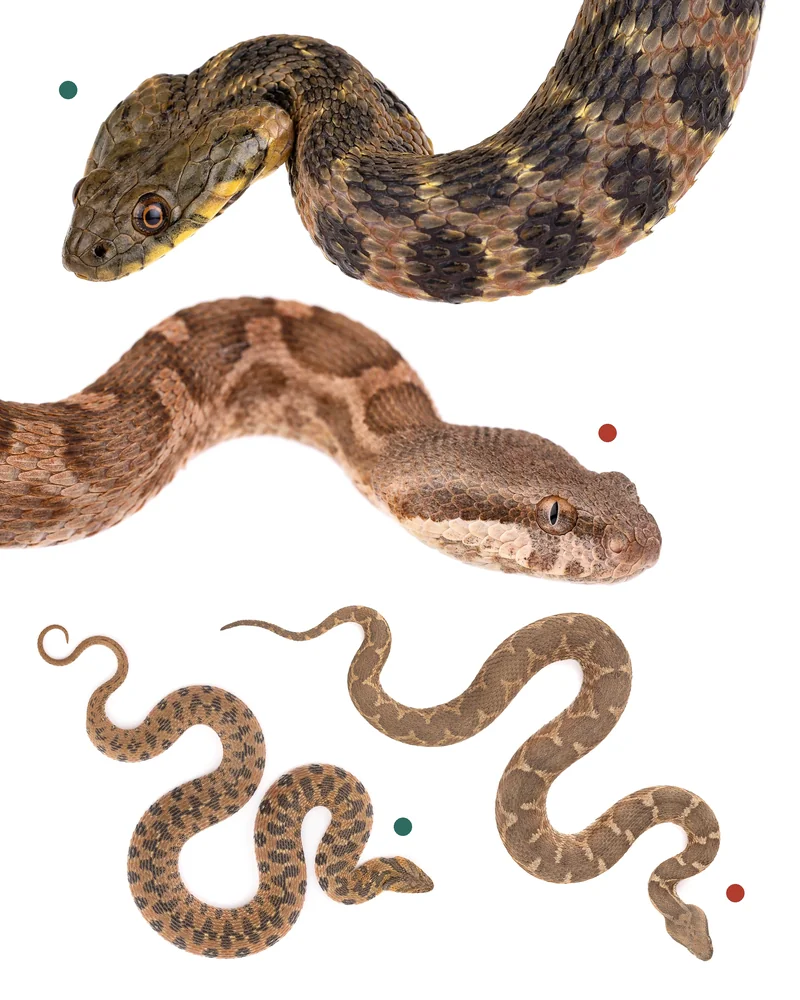
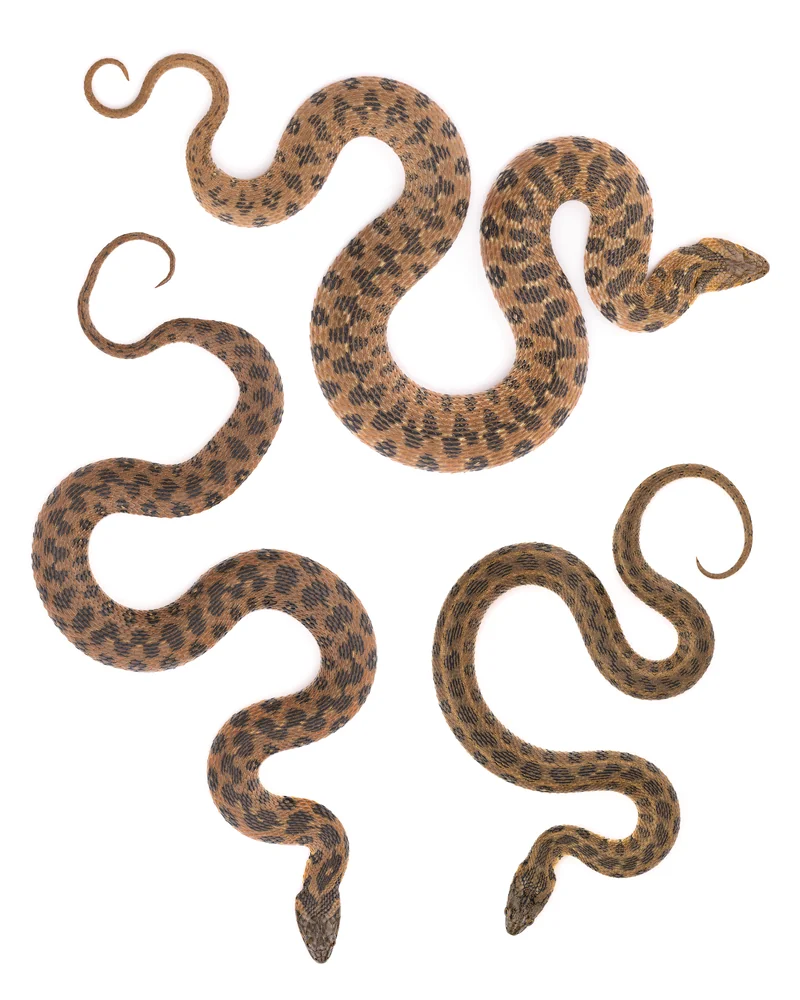
حراشف الظهر شديدة التحدّب باستثناء الصفوف الملامسة للحراشف البطنية53. ولونه الأرضي زيتوني أو بني أو رمادي، ومحمرّ أحيانًا. ويتكوّن رسم الظهر من بقع داكنة مستديرة أو مربعة تتناوب على طول خط الفقرات، وقد تتصل أحيانًا فتشكّل خطًا متعرّجًا. وتتناوب البقع الجانبية مع البقع الظهرية، وكثيرًا ما تشكّل عيونًا ذات مركز مائل إلى البياض. والحراشف الشفوية فاتحة ذات حواف داكنة. والبطن رمادي إلى مصفرّ تتخلله بقع سوداء53.

وهناك نمط ظاهري ثانٍ مخطّط وأندر يُعرف بـ bilineata، يضيف إلى رسم الظهر شريطين فاتحين على جانبي الظهر، وقد يجتمعان مع الخط المتعرّج عند بعض الأفراد5451.

وقد وُجدت في البرية أفراد مَهَقية وأخرى سوداء اللون (ميلانية)55.

يُعدّ حنش الماء (Natrix maura) حاليًا نوعًا أحادي النمط، وإن كان تقسيمه قد اقتُرح دون أن يُحسم بعد. وتوجد ثلاث سلالات جينية رئيسية، وربما أربع، تقابل المغرب وتونس (مع سردينيا) وأوروبا، مع سلالة رابعة محتملة في جنوب إسبانيا20. وقد ألحق تعيين إضافي في شمال غرب إفريقيا حيوانات مصبّ ملوية (شرق المغرب) بحيوانات وسط الجزائر وغربها بدلًا من بقية المغرب4، وبذلك يضمّ البلد سلالتين لا سلالة واحدة.

وقد تطوّرت كل هذه السلالات بشكل منفصل منذ نحو 5 ملايين سنة، وتحتل السلالات الإفريقية موقعًا قاعديًا، مما يرجّح أن أصل النوع إفريقي. ويمكن لمثل هذا التباعد أن يبرّر اعتبار هذه السلالات نُوَيعات، بل وأنواعًا مستقلة، لكن ذلك يتطلب مزيدًا من التحليلات والعيّنات20. وحنش الماء هو النوع الشقيق لجميع أنواع جنس Natrix الأخرى، وقد انفصل عنها في بداية الميوسين، قبل نحو 21.5 مليون سنة57.
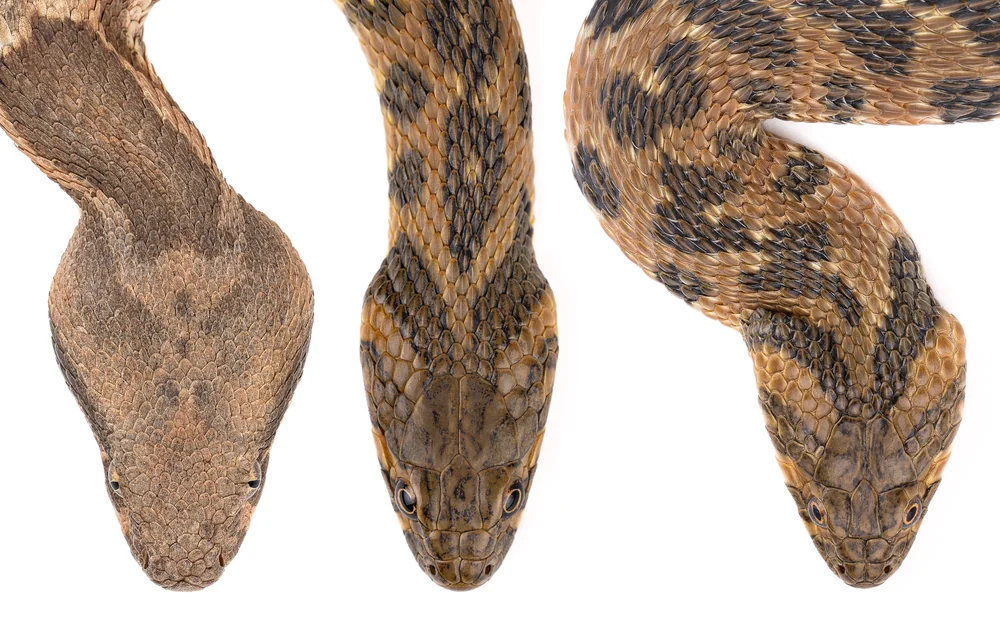
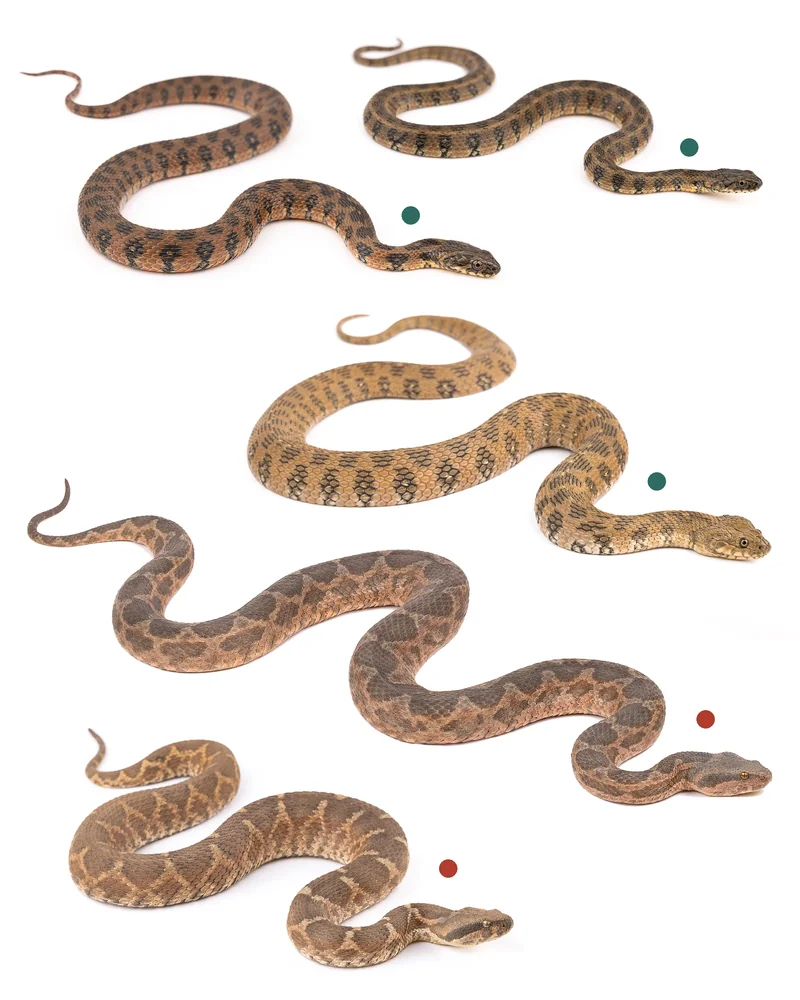
قد يُخلط بين حنش الماء (Natrix maura) والأفاعي الحقيقية، مثل أفعى الأطلس (Vipera monticola) والأفعى الموريطانية (Daboia mauritanica). ويسهل تمييزه عنها بعينيه الكبيرتين المتجهتين إلى الأعلى ذواتي الحدقة المستديرة، وبحراشف رأسه الكبيرة، بينما للأفاعي عيون أصغر ذات حدقة عمودية وحراشف رأس صغيرة29. اطّلع على دليلنا «سامة أم غير مؤذية؟».

وفي الجبال الرطبة شمالًا، قد يُخلط أيضًا بالحنش المطوق (Natrix astreptophora) الذي يعيش في المناطق نفسها. وللحنش المطوق عينان حمراوان أو برتقاليتان على جانبي الرأس لا على أعلاه، ولون خلفية أكثر تجانسًا ومائل إلى الرمادي19.

والتهجين بين النوعين نادر جدًا. فلا يُعرف سوى ثلاثة هجائن محتملة من الأندلس، أُكّد واحد منها جينيًا198، ولا شيء من المغرب.

يقتصر انتشار حنش الماء (Natrix maura) على غرب البحر الأبيض المتوسط. ففي أوروبا يستوطن إسبانيا والبرتغال وفرنسا وأقصى جنوب غرب سويسرا وشمال غرب إيطاليا، وفي إفريقيا يوجد في المغرب والجزائر وتونس والساحل الليبي53.

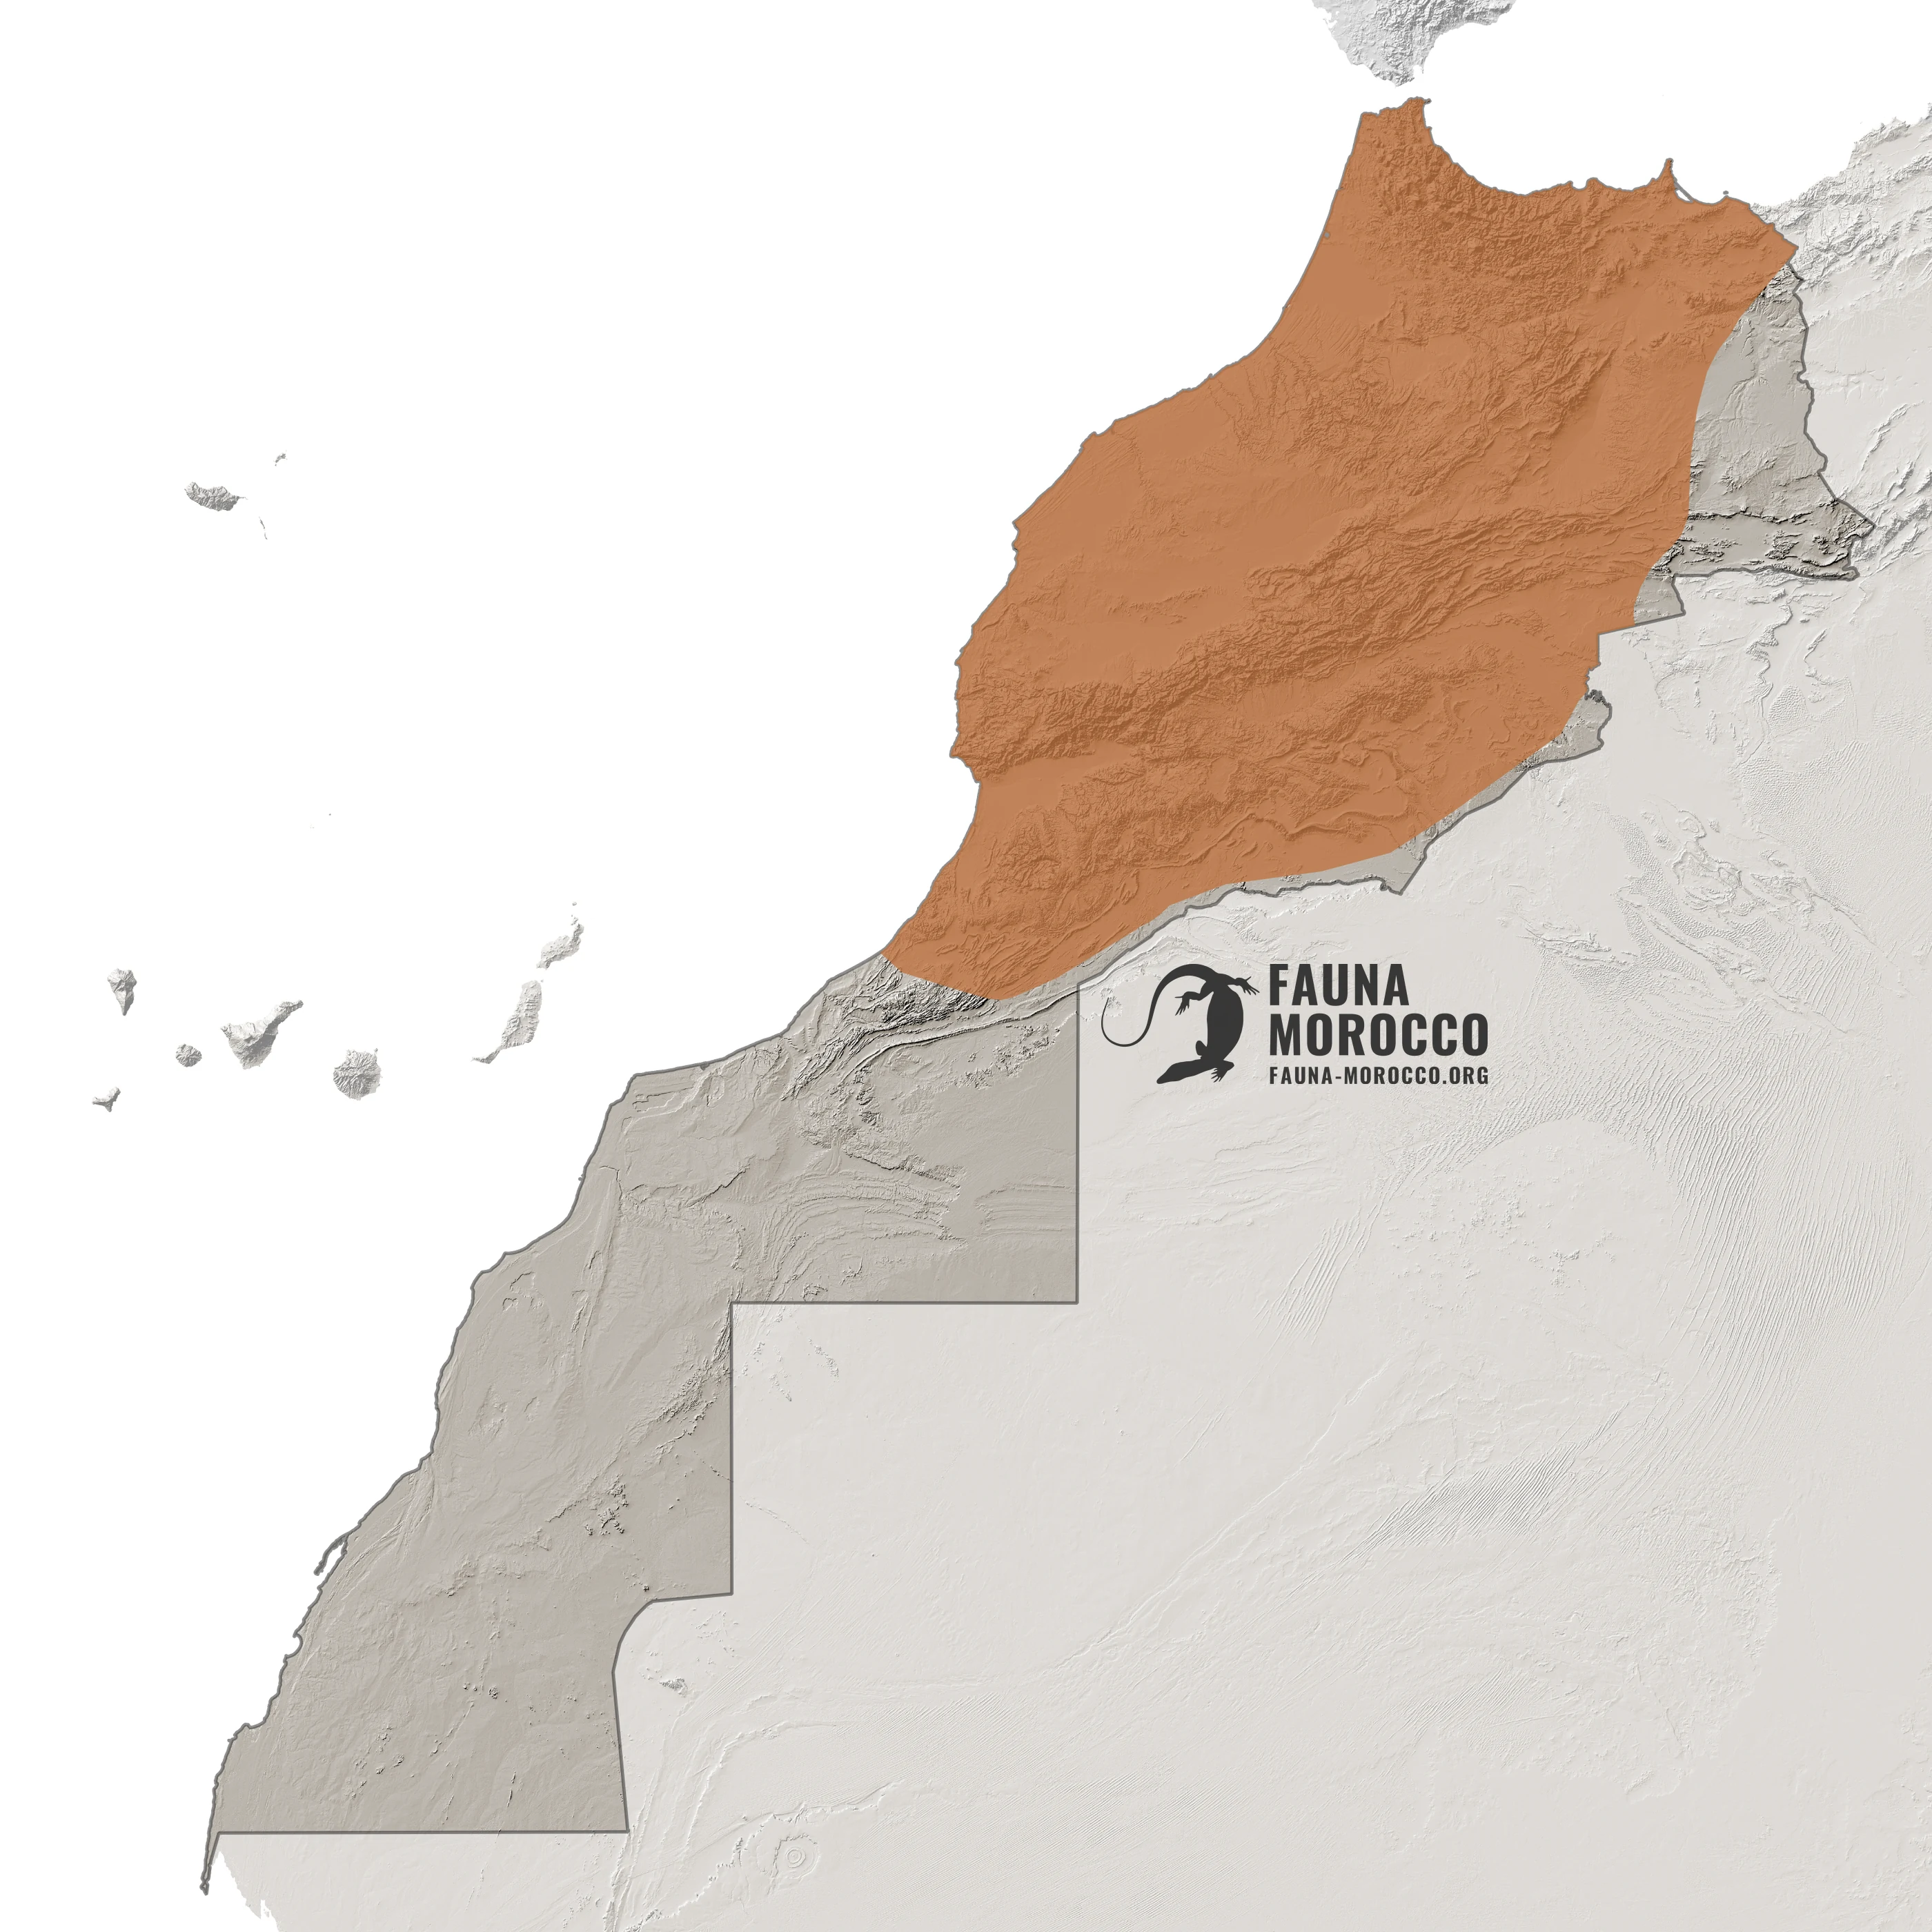
وفي المغرب، ينتشر النوع في معظم أنحاء البلاد لكنه يغيب في الغالب عن المناطق الصحراوية31. ويضمّ المغرب 18.9% من نطاق انتشاره العالمي39، وهو من أكثر الثعابين وفرة في البلاد5. وفي الشمال، ينتشر على نطاق واسع في كامل الريف15. وفي الشرق، يشكّل وادي ملوية منطقة جافة واسعة لا تناسب النوع إلا قرب الساحل المتوسطي4. ويمتد وجوده من مستوى سطح البحر حتى 2600 م في الأطلس الكبير5، وحتى نحو 2700 م في جبل سيروا32.

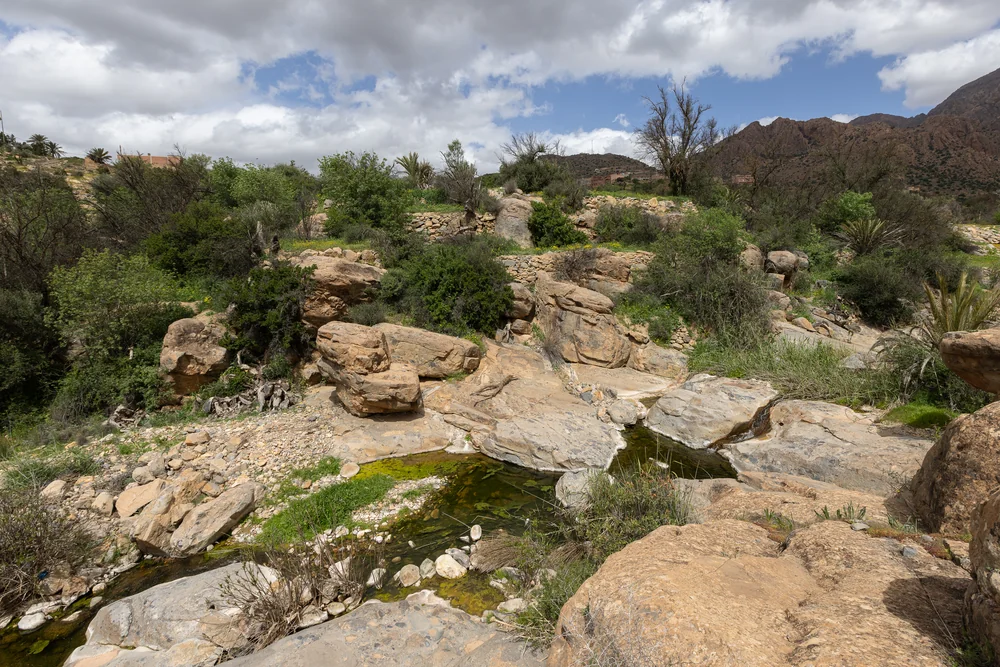
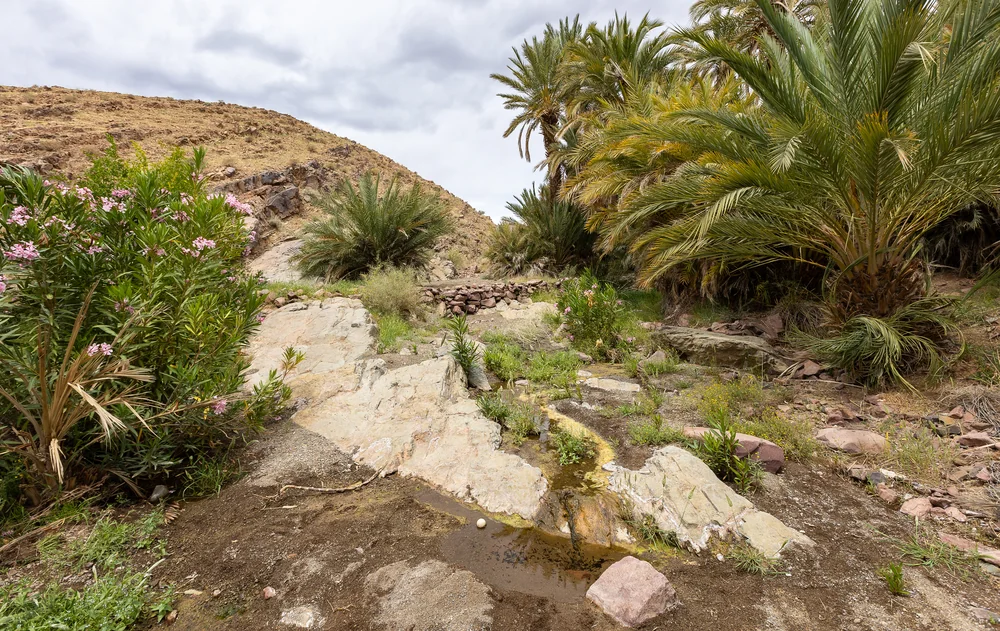
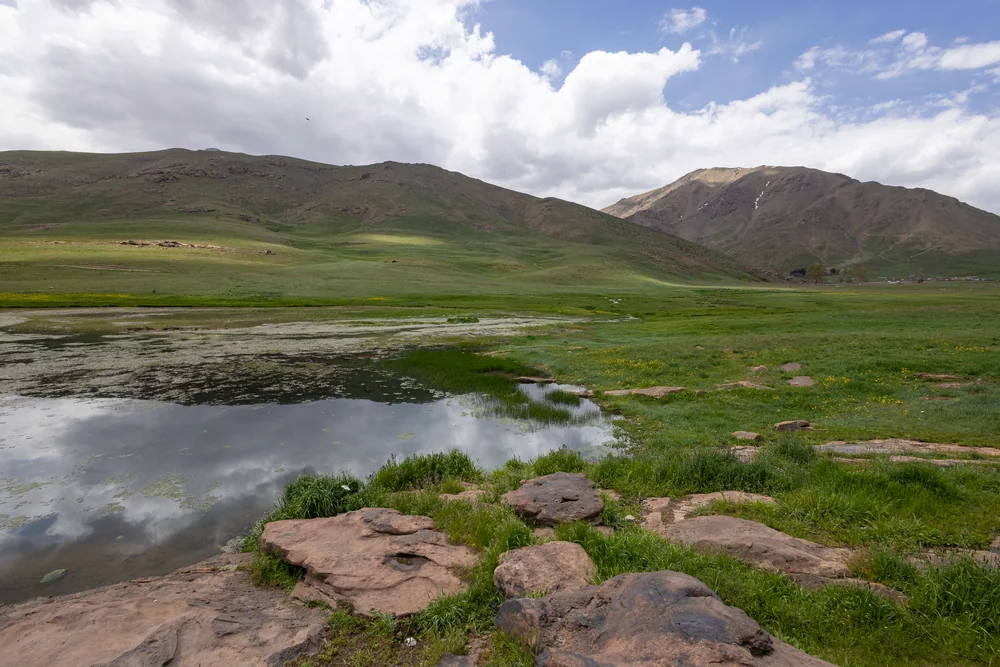
وتحدّ قحولة الصحراء الكبرى نطاق انتشاره جنوبًا، لكن جماعاته تستمر حتى تخوم الصحراء حيثما كان الماء دائمًا. لذا يمكن العثور عليه على طول أودية مثل وادي زيز ووادي درعة3154، وحول المسطحات المائية الصغيرة556، وفي البحيرات المالحة المعزولة. وجنوب الأطلس الصغير يصبح انتشاره متقطعًا ويتبع الأودية الصغيرة والواحات40. وتوجد أقصى جماعة جنوبية في كامل نطاق النوع في آسا بالمغرب954. أما في الجزائر، فإن تسجيلًا في سبخة الملح، على بعد 370 كم داخل الصحراء، يمثّل أقصى حالة لجماعة تستمر في موقع رطب معزول وسط الصحراء6.

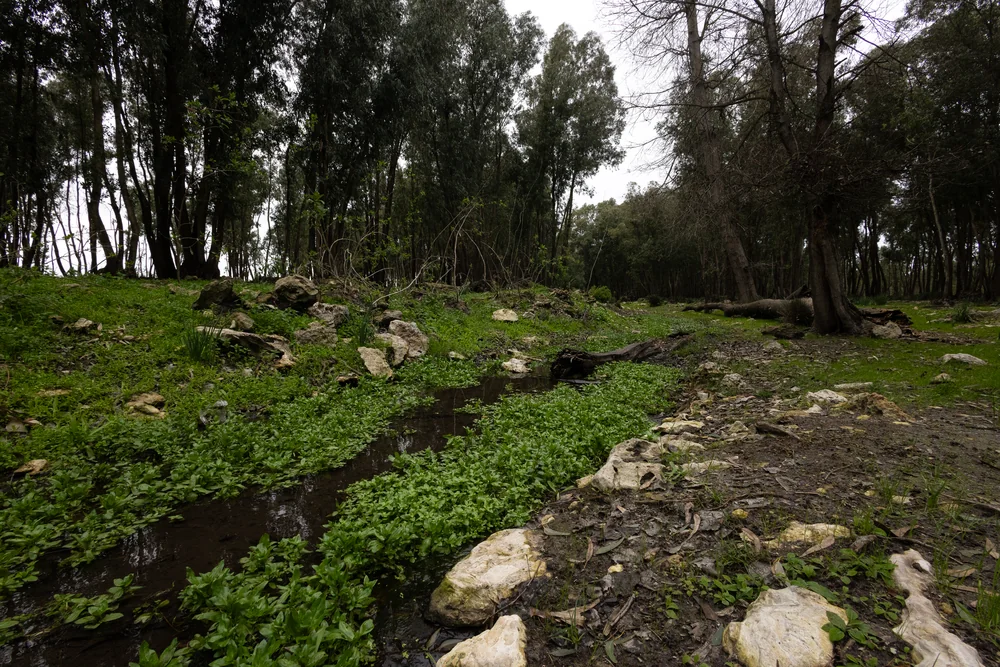
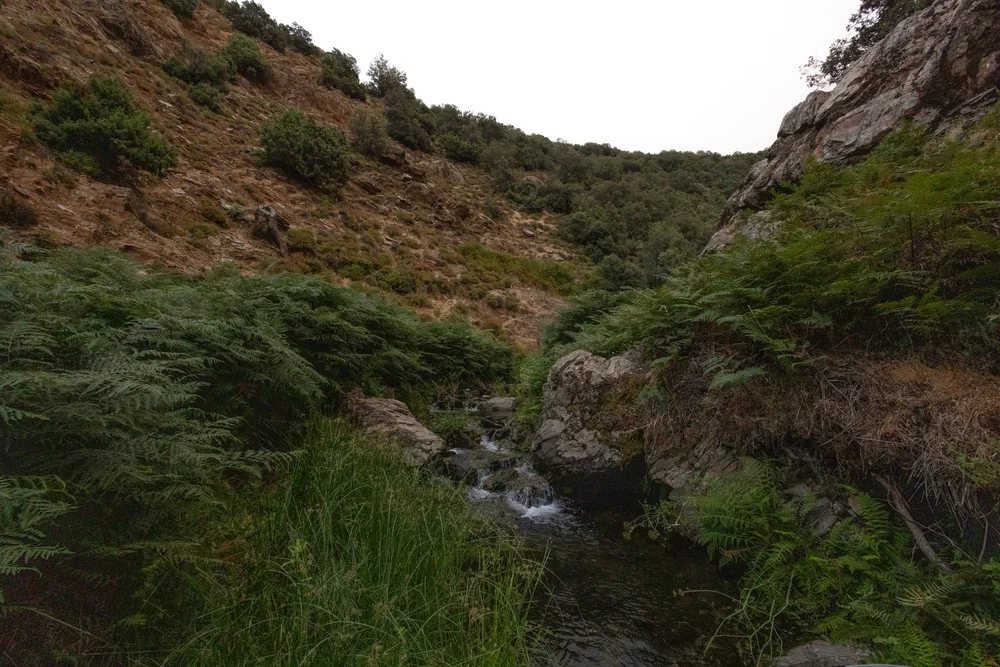
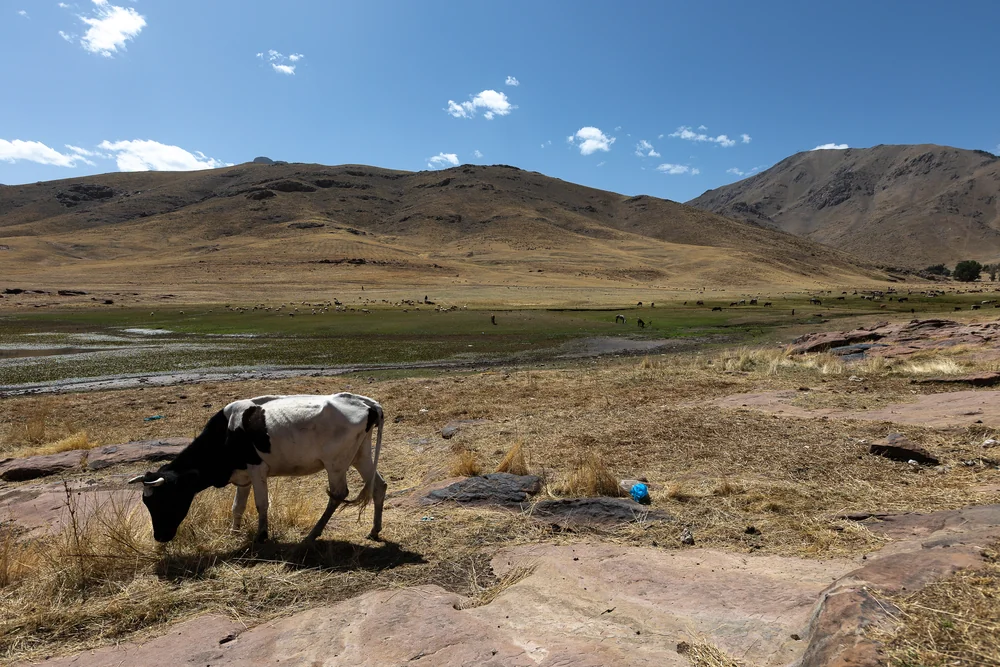
في المغرب، يشغل حنش الماء (Natrix maura) كل أنواع المياه العذبة في مناخات تتراوح من الرطب إلى الجاف. وفي المناطق الجافة من البلاد، يرتبط ارتباطًا وثيقًا بالمواقع ذات المياه الدائمة، وأساسًا الأودية والواحات55612. ويستغل المسطحات المائية الاصطناعية بالقدر نفسه الذي يستغل به الطبيعية، ومنها أحواض الري وقنواته والنافورات والخنادق والبرك والسدود، ويستعمر المواقع الجديدة بسرعة متى توفرت فيها فرائس مناسبة53. كما يرتاد المياه قليلة الملوحة في المستنقعات الساحلية وعلى السواحل الصخرية53. والنوع عامّ في اختيار موائله13.

وفي الريف، يشغل الطوابق المناخية من المتوسطي الحار إلى المتوسطي العلوي (من 1 إلى 1500 م)، بما في ذلك مناطق غزيرة الأمطار وباردة الشتاء15. ولا يتوقف وجوده إلا على الماء، بغض النظر عن الانحدار وطبيعة الصخور والغطاء النباتي، وعادةً ما يُعثر عليه بجوار الماء مباشرة15، بينما تختبئ الحيوانات في فترة الراحة تحت الحجارة وفي الجحور29 (رصد شخصي).

خلال بعثاتنا، عثرنا على أفراد كثيرة في أوساط متنوعة جدًا، منها أودية شبه جافة في المناطق القاحلة، وجداول جبلية على ارتفاع 2600 م، وأراضٍ زراعية، وغابات من أنواع عديدة. وقد شوهد حنش الماء في المياه الجارية والراكدة على حد سواء (رصد شخصي).

يتقاسم حنش الماء المياه المغربية مع الحنش المطوق (Natrix astreptophora) في المناطق الجبلية الرطبة بالريف والأطلس المتوسط. ومع ازدياد الارتفاع، يحلّ الثاني تدريجيًا محل الأول15.

يخرج حنش الماء (Natrix maura) من سباته في مارس، أو في أبريل في المناطق الأبرد، وقد يُرى متشمّسًا في أيام الشتاء المشمسة. ويبلغ نشاطه ذروته في الربيع مع التزاوج، ثم مرة أخرى في الخريف مع الفقس1846. وخلال حرّ الصيف، تقضي الثعابين فترات طويلة في الماء أو تصبح أكثر نشاطًا في الليل2337. وفي جنوب نطاقه، قد يصبح النوع ليليًا بشكل شبه تام خلال أشد فترات السنة حرارة59.

ترتبط البيولوجيا الحرارية للنوع ارتباطًا وثيقًا بنمط حياته المائي. إذ تتراوح حرارة جسم الحيوانات النشطة بين 14 و35 °C تقريبًا27284226، مع حرارة مفضّلة بين 24.7 و29 °C5822. وتبلغ الإناث المتكاثرة حرارة جسم أعلى من باقي البالغين42، على الأرجح لتسريع نمو البيض. ويبدو أن الهضم يتطلب حرارة جسم تفوق 10 إلى 15 °C24. وعندما يكون مغمورًا في الماء، يتصرف الثعبان كمتوافق حراري، فتعادل حرارة جسمه حرارة الماء272842.

وعلى اليابسة، يتغير سلوك التنظيم الحراري حسب الفصول. ففي الربيع تتشمّس الثعابين في الأماكن المكشوفة لامتصاص أكبر قدر من حرارة الشمس. وفي الصيف، حين تكون حرارة الجو كافية، تفضّل الاحتماء تحت الحجارة التي سخّنتها الشمس واكتساب الحرارة منها42. ومن المرجح أن التشمّس يساعد أيضًا على تسريع الهضم24.

تنقلات النوع محدودة وتتغير حسب الفصول. ففي إسبانيا، شغلت ذكور متتبَّعة بالقياس اللاسلكي مجالات حيوية بمعدل 5.8 هكتار في مايو، خلال فترة التزاوج، مقابل 0.7 هكتار في يوليو. كما قطعت مسافات أطول في الربيع منها في الصيف44. وحين يحصر جفاف الصيف الفرائس في آخر البرك المتبقية، لا تستدعي الضرورة إلى التنقل لمسافات طويلة بحثًا عن الغذاء43.

يتغذى حنش الماء (Natrix maura) أساسًا على الأسماك والبرمائيات التي يصطادها في الماء455411. وتعكس نسبة الأسماك إلى البرمائيات الفرائس المتاحة محليًا، مما يجعل النوع مفترسًا انتهازيًا إلى حد ما53. ويأكل أيضًا اللافقاريات، خاصة الصغار منه، إذ تشكّل ديدان الأرض والشراغيف جزءًا كبيرًا من غذائها2154. ويفترس أحيانًا ثدييات صغيرة وزواحف3861.

لم تُجرَ أي دراسة لنظامه الغذائي في المغرب. وكما في باقي نطاقه، يُرجَّح أن غذاءه هناك يتبع الفرائس المتاحة محليًا53.

يعتمد النوع طريقتين رئيسيتين في الصيد. ففي صيد الكمين، وهو الأكثر شيوعًا لدى الأفراد الكبيرة، يبقى الحيوان ساكنًا في قاع الماء أو بين الحطام والنباتات، ثم ينقضّ على الأسماك المارّة. وتعتمد هذه الطريقة أساسًا على البصر، وأيضًا على اللمس، إذ تنقضّ الثعابين على الأجسام التي تلمسها، حتى وإن لم تكن فرائس21. أما الأفراد الصغيرة فتلجأ أكثر إلى الصيد النشط، فتتحرك ببطء على الأرض الرطبة وفي المياه الضحلة وهي تحرّك لسانها وتستعين بحاسة الشم21.

ويتوقف التوازن بين طريقتي الصيد أيضًا على حرارة الماء. إذ يُستعمل الكمين أكثر في الماء الأبرد من نحو 14 °C، والصيد النشط في الماء الأدفأ من نحو 20 °C3. لذلك يكثر الصيد النشط في المياه الضحلة والأدفأ213. وقد وُصفت عدة أشكال منه: استدراج الأسماك باللسان، والكمين من الضفة والجسم معلّق جزئيًا فوق الماء، وتسلّق الأوراق لاصطياد ضفادع الشجر36331. وتُنقل الأسماك الكبيرة إلى اليابسة قبل ابتلاعها، كما شوهدت هذه الثعابين تمسك فرائس مائية خارج الماء حتى تموت35373.

قد تكون الفرائس كبيرة جدًا مقارنة بحجم الثعبان، إذ يستطيع البالغون ابتلاع فرائس يصل حجمها إلى 80% من حجم جسمها49، وتُبتلع معظم الأسماك (87%) من جهة الرأس21. وفي بعض الجماعات، تواصل الإناث الحوامل التغذي رغم الحيز الذي يشغله البيض1649.

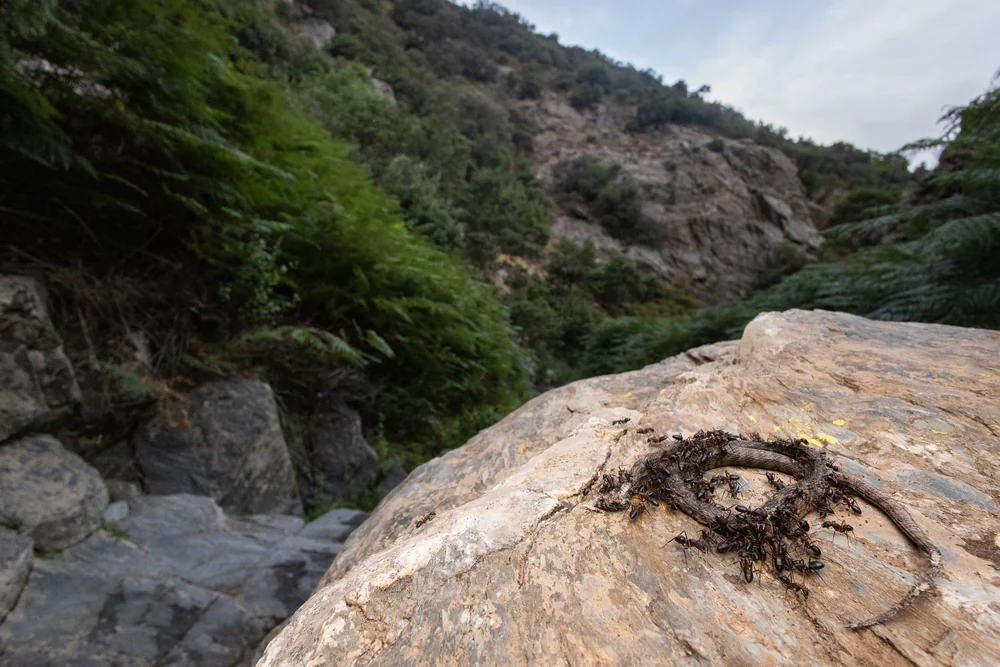
ضغط الافتراس شديد ومصدره أساسًا الطيور والثدييات. ومن المرجح أن مالك الحزين واللقالق والجوارح هي المفترسات الرئيسية، أما من الثدييات فنجد ثعلب الماء والدلق الصخري وغيرهما من اللواحم الصغيرة، إضافة إلى الخنزير البري53. كما يفترسه حنش مونبليي (Malpolon monspessulanus) الشائع في المغرب5029. والنمس المصري (Herpestes ichneumon) مفترس محتمل في أجزاء من نطاق النوع (تواصل شخصي). وقد بلغت نسبة الذيول المكسورة، وهي علامة على محاولات افتراس فاشلة، 18.7% في ثلاث جماعات إيبيرية طبيعية50.

أول ردّ فعل لحنش الماء (Natrix maura) هو بلوغ الماء والفرار سباحةً أو غوصًا. وتميل الأفراد الأكبر إلى الفرار، بينما يبقى بعضها ساكنًا في قاع البركة، وهو سلوك أكثر شيوعًا لدى الثعابين الصغيرة أو الجائعة أو الباردة722.

الدفاع المميز لهذا النوع، ومنه اشتُقّ اسمه، هو مشاكهة بيتسية للأفاعي. فيُفلطح الرأس على شكل مثلث، ويلتفّ الجسم وينتفخ بوضوح، ويفحّ الثعبان2. ثم يندفع برأسه ومقدمة جسمه نحو المعتدي، دون أن يفتح فمه أو يحاول العضّ فعلًا29. والعضّ في الواقع نادر جدًا29 (رصد شخصي). وعند الإمساك به، يفرز الحيوان مادة كريهة من غدد المجمع، وكثيرًا ما يتقيأ فرائسه المصطادة حديثًا53. وغالبًا ما تختلط هذه الإفرازات بالفضلات، فيهزّ الثعبان ذيله لينشر هذا المزيج كريه الرائحة على مهاجمه. والرائحة قوية جدًا وقد تدوم عدة ساعات حتى بعد الغسل بالماء (رصد شخصي).

اختُبرت القيمة الوقائية لرسم الظهر تجريبيًا. ففي تجارب ميدانية بنماذج من عجينة التشكيل، هاجمت الطيور 19% من النماذج التي تحمل الخط المتعرّج المعتاد، مقابل 25% من النماذج الشاهدة غير المرسومة و35% من النماذج المخطّطة51. كما تميل حناش الماء المخطّطة إلى الفرار لمسافة أبعد عند إزعاجها51. وقد يؤدي الخط المتعرّج دور التمويه وإشارة التحذير معًا51.

حنش الماء (Natrix maura) بيوض. ويبدأ التزاوج فور خروج الثعابين من السبات، إذ تستعمل الذكور منيًا مخزّنًا طوال الشتاء47. وقد تحدث فترة تزاوج ثانية في الخريف10. وتحدث تجمعات تزاوج، ضمّ أحدها الموثّق ثمانية حيوانات لم يكن بينها على الأرجح سوى أنثى واحدة60. وتتكاثر سنويًا بين 70 و100% من الإناث البالغة حسب الجماعة، وتضع حضنة واحدة في الموسم في البرية53.

يتراوح حجم البيض بين 28 و37 مم طولًا و14 و19 مم عرضًا، وتدوم الحضانة 40 إلى 45 يومًا، فتظهر الصغار في أغسطس بطول كلي بين 146 و220 مم1047. ويرجّح أن موعد الفقس يختلف حسب الارتفاع والمناخ. ويتراوح حجم الحضنة بين 2 و27 بيضة، بمعدل 7.3، ويزداد مع حجم الأنثى53. وتنضج الذكور في سن سنتين أو ثلاث وبطول من الخطم إلى المجمع بين 220 و250 مم، والإناث في سن أربع إلى ست سنوات وبطول بين 312 و350 مم17.

يتبع معدل النمو، ومن ثمّ الحجم في عمر معيّن، طول موسم التغذية على الأرجح17. وكان أكبر فرد بري معروف، حُدّد عمره بتحليل الحلقات العظمية، يبلغ 22 سنة17. ويتباطأ النمو في نحو التاسعة عشرة من العمر، ويحدث ذلك عند الذكور قبل الإناث بسنة تقريبًا17.

يُصنَّف حنش الماء (Natrix maura) عالميًا من قِبل الاتحاد الدولي لصون الطبيعة ضمن فئة «غير مهدّد»، مع اتجاه متناقص لأعداده، نظرًا لانتشاره الواسع وأعداده المفترض أنها كبيرة. ووصفه تقييم عام 2009 بأنه شائع جدًا، لكنه ربما يتراجع محليًا في بعض مناطق شمال إفريقيا34. كما أُدرج ضمن فئة «غير مهدّد» في القائمة الحمراء الإقليمية المقترحة للمغرب، التي لم تسجّل أي تهديد للنوع في البلاد39. ويخص التراجع الموثّق أوروبا أساسًا، حيث انخفضت أعداده بنسبة 55% في جنوب فرنسا بين 1980 و2018، بينما ظل الاتجاه مستقرًا في إسبانيا. ولا تتعلق أي من هذه البيانات بالمغرب52.

ورغم أن النوع لا يُعدّ مهدّدًا، فإن عدة عوامل قد تؤثر في جماعاته بالمغرب:

  • تلوث المياه، الذي يؤثر أساسًا من خلال اختفاء الأسماك التي يتغذى عليها النوع3440.
  • القتل المباشر والمتعمَّد من قِبل أشخاص يحسبونه أفعى، رغم أنه غير مؤذٍ تمامًا405325.
  • النفوق على الطرق، الذي يُرجَّح أن يكون مهمًا في المغرب كما في كتالونيا، حيث شكّل حنش الماء 18% من الثعابين التي وُجدت نافقة على الطرق30.
  • تراكم الملوثات البشرية المصدر عبر فرائسه، كما هو متوقع لدى مفترس مائي طويل العمر (فقد رُصدت عدة مبيدات وملوثات أخرى لدى حيوانات إيبيرية)48.
  • الجفاف المطوّل وجفاف الأودية بسبب ضخ المياه، مما قد يؤدي إلى انقراضات محلية في جنوب المغرب5340.
  • الغرق أو الموت جوعًا في منشآت تخزين المياه التي يستطيع دخولها دون الخروج منها، مثل الأحواض الكبيرة المبطّنة بالبلاستيك والخزانات ذات الجدران العمودية29.

الخرائط

  • Bons, J., & Geniez, P. (1996). Amphibiens et reptiles du Maroc (Sahara Occidental compris). Atlas biogéographique. Asociación Herpetológica Española.
  • Martínez del Mármol, G., Harris, D. J., Geniez, P., de Pous, P., & Salvi, D. (2019). Amphibians and Reptiles of Morocco. Frankfurt Contributions to Natural History, 74. Edition Chimaira.
  1. Alarcos, G., Flechoso, F., Codesal, R., & Lizana, M. (2012). Comportamiento trepador de Natrix maura para capturar un ejemplar adulto de Hyla arborea. Boletín de la Asociación Herpetológica Española, 23(2), 43–45. — via Santos et al. (2024)53.
  2. Aubret, F., & Mangin, A. (2014). The snake hiss: Potential acoustic mimicry in a viper-colubrid complex. Biological Journal of the Linnean Society, 113(4), 1107–1114. https://doi.org/10.1111/bij.12374 — via Santos et al. (2024)53.
  3. Aubret, F., Tort, M., & Sarraude, T. (2015). Evolution of alternative foraging tactics driven by water temperature and physiological constraints in an amphibious snake. Biological Journal of the Linnean Society, 115(2), 411–422.
  4. Barata, M., Harris, D. J., & Castilho, R. (2008). Comparative phylogeography of northwest African Natrix maura (Serpentes: Colubridae) inferred from mtDNA sequences. African Zoology, 43(1), 1–7. https://doi.org/10.1080/15627020.2008.11407400
  5. Bons, J., & Geniez, P. (1996). Amphibiens et reptiles du Maroc (Sahara Occidental compris). Atlas biogéographique. Asociación Herpetológica Española.
  6. Bouam, I., Chedad, A., & Sadine, S. E. (2024). Swimming in the Sahara: A new locality record and range extension of Natrix maura (Linnaeus, 1758) (Squamata, Colubridae) from central Algeria. Arxius de Miscel·lània Zoològica, 22, 129–142. https://doi.org/10.32800/amz.2024.22.0129 — via Santos et al. (2024)53.
  7. Braña, F. (1998). Natrix maura. In A. Salvador (Coord.) & M. A. Ramos et al. (Eds.), Fauna Ibérica, vol. 10, Reptiles (pp. 440–454). Museo Nacional de Ciencias Naturales, CSIC. — via Santos (2015)43.
  8. Criado-Flórez, A., González de la Vega, J. P., Martínez del Marmol, G., & Fritz, U. (2025). A genetically confirmed hybrid between Natrix astreptophora and N. maura, two deeply divergent and ancient snake species. Herpetozoa, 38, 21–24. https://doi.org/10.3897/herpetozoa.38.e140551
  9. de Lepiney, J., & Nemeth, F. (1945-47). Notes zoologiques marocaines. Bulletin de la Société des Sciences Naturelles et Physiques du Maroc, 25–27, 227–233. — via Santos et al. (2024)53.
  10. Duguy, R., & Saint-Girons, H. (1966). Cycle annuel d'activité et reproduction de la couleuvre vipérine Natrix maura (L.), d'après les notes manuscrites de Rollinat et des observations personnelles. La Terre et la Vie, 4, 423–457. https://doi.org/10.3406/revec.1966.4474 — via Santos et al. (2024)53.
  11. Escoriza, D. (2018). Patterns of occurrence of semi-aquatic reptiles in highly invaded Mediterranean rivers. NeoBiota, 38, 23–35. https://doi.org/10.3897/neobiota.38.23940
  12. Escoriza, D., & Ben Hassine, J. (2017). Niche separation among north-west African semi-aquatic reptiles. Hydrobiologia, 797, 47–56. https://doi.org/10.1007/s10750-017-3157-8
  13. Escoriza, D., & Pascual, G. (2021). Habitat occupancy by semi-aquatic reptiles on an aridity gradient in the western Mediterranean. River Research and Applications, 37(9), 1233–1242.
  14. Fahd, S. (2001). Biogéographie, morphologie et écologie des ophidiens du Rif (Nord du Maroc) [Thèse de doctorat d'État]. Université Abdelmalek Essaâdi, Tétouan. — via Santos et al. (2024)53.
  15. Fahd, S., & Pleguezuelos, J. M. (2001). Los reptiles del Rif (Norte de Marruecos), II: Anfisbenios y ofidios. Comentarios sobre la biogeografía del grupo. Revista Española de Herpetología, 15, 13–36.
  16. Feriche, M., & Pleguezuelos, J. M. (1999). Características de la reproducción de la culebra viperina, Natrix maura (Linnaeus, 1758), en la Depresión de Granada (sureste ibérico). Revista Española de Herpetología, 13, 37–48. — via Santos et al. (2024)53.
  17. Filippakopoulou, A., Santos, X., Feriche, M., Pleguezuelos, J. M., & Llorente, G. A. (2014). Effect of prey availability on growth-rate trajectories of an aquatic predator, the viperine snake Natrix maura. Basic and Applied Herpetology, 28, 35–50. https://doi.org/10.11160/bah.14001
  18. Galán, P. (1988). Segregación ecológica en una comunidad de ofidios. Doñana, Acta Vertebrata, 15, 59–78. — via Santos et al. (2024)53.
  19. González de la Vega, J. P., Barnestein, J. A. M., Martínez del Marmol, G., & Mebert, K. (2021). Hybridization between Natrix astreptophora and Natrix maura: Potential cases from Andalusia, Spain. Boletín de la Asociación Herpetológica Española, 32(2), 115–123.
  20. Guicking, D., Joger, U., & Wink, M. (2008). Molecular phylogeography of the viperine snake Natrix maura (Serpentes: Colubridae): Evidence for strong intraspecific differentiation. Organisms Diversity & Evolution, 8(2), 130–145. https://doi.org/10.1016/j.ode.2007.05.001
  21. Hailey, A., & Davies, P. M. C. (1986a). Diet and foraging behaviour of Natrix maura. Herpetological Journal, 1, 53–61.
  22. Hailey, A., & Davies, P. M. C. (1986b). Effects of size, sex, temperature and condition on activity metabolism and defence behaviour of the viperine snake, Natrix maura. Journal of Zoology, 208(4), 541–558. — via Santos et al. (2024)53; Santos et al. (2018)51.
  23. Hailey, A., & Davies, P. M. C. (1986c). Lifestyle, latitude and activity metabolism of natricine snakes. Journal of Zoology, 209(4), 461–476. — via Santos et al. (2024)53.
  24. Hailey, A., & Davies, P. M. C. (1987a). Digestion, specific dynamic action, and ecological energetics of Natrix maura. Herpetological Journal, 1, 159–166.
  25. Hailey, A., & Davies, P. M. C. (1987b). Growth, movement and population dynamics of Natrix maura in a drying river. Herpetological Journal, 1, 185–194.
  26. Hailey, A., & Davies, P. M. C. (1987c). Activity and thermoregulation of the snake Natrix maura. 1. R and K thermoregulation. Journal of Zoology, 213, 71–80. — via Santos et al. (2024)53.
  27. Hailey, A., Davies, P. M. C., & Pulford, E. (1982). Lifestyle and thermal ecology of natricine snakes. British Journal of Herpetology, 6, 261–268. — via Santos et al. (2024)53.
  28. Jaén, M. J., & Pérez-Mellado, V. (1989). Temperaturas corporales y ritmos de actividad en una población de Natrix maura (L.) del Sistema Central. Doñana, Acta Vertebrata, 16, 203–217. — via Santos et al. (2024)53.
  29. León Vigara, R. (2013). Natrix maura (Linnaeus, 1758). In G. Martínez, R. León, O. Jiménez-Robles, J. P. González de la Vega, V. Gabari, B. Rebollo, A. Sánchez-Tójar, J. R. Fernández-Cardenete & J. Gállego (Eds.), Moroccoherps. Anfibios y reptiles de Marruecos y Sahara Occidental. Version 16/06/2013.
  30. Llorente, G. A., Garriga, N., Montori, A., Richter-Boix, A., & Santos, X. (2005). Incidència de les carreteres sobre els amfibis i rèptils de Catalunya. Departament de Política Territorial i Obres Públiques, Generalitat de Catalunya. — via Santos et al. (2024)53.
  31. Martínez del Mármol, G., Harris, D. J., Geniez, P., de Pous, P., & Salvi, D. (2019). Amphibians and reptiles of Morocco. Edition Chimaira. — via Pleguezuelos et al. (2025)40; Santos et al. (2024)53.
  32. Martínez-Freiría, F. et al. (2017). Contribution to the knowledge on the reptile fauna of Jebel Sirwa (Morocco), with some insights into the conservation status of Vipera latastei-monticola. Boletín de la Asociación Herpetológica Española, 28(1), 103–108.
  33. Martorell, E. (1990). Natrix maura: ¿Posibilidad de aprendizaje? Boletín de la Asociación Herpetológica Española, 1, 24. — via Santos et al. (2024)53.
  34. Mateo Miras, J. A., Cheylan, M., Saïd Nouira, M., Joger, U., Sá-Sousa, P., Pérez-Mellado, V., Schmidt, B., Meyer, A., Sindaco, R., Romano, A., & Martínez-Solano, I. (2009). Natrix maura. The IUCN Red List of Threatened Species 2009: e.T61538A12510365. https://dx.doi.org/10.2305/IUCN.UK.2009.RLTS.T61538A12510365.en Accessed on 19 August 2026.
  35. Meijide, M., & Salas, R. (1989). Observaciones sobre el comportamiento depredativo de algunos colúbridos ibéricos en estado salvaje. Doñana, Acta Vertebrata, 16, 329–332. — via Santos et al. (2024)53.
  36. Naulleau, G. (1964). Premières observations sur le comportement de chasse et de capture chez les vipères et les couleuvres. La Terre et la Vie, 1, 54–76. — via Santos et al. (2024)53.
  37. Pleguezuelos, J. M., & Feriche, M. (2003). Anfibios y reptiles. Los Libros de la Estrella nº 18, Guías de la Naturaleza. Diputación de Granada. — via Santos et al. (2024)53.
  38. Pleguezuelos, J. M., & Moreno, M. (1989). Alimentación primaveral de Natrix maura (Linné, 1758) (Ophidia, Colubridae) en el SE de la Península Ibérica. Revista Española de Herpetología, 3, 221–236. — via Santos et al. (2024)53.
  39. Pleguezuelos, J. M., Brito, J. C., Fahd, S., Feriche, M., Mateo, J. A., Moreno-Rueda, G., Reques, R., & Santos, X. (2010). Setting conservation priorities for the Moroccan herpetofauna: The utility of regional red lists. Oryx, 44(4), 501–508. https://doi.org/10.1017/S0030605310000992
  40. Pleguezuelos, J.M., Santos, X., Carretero, M., Crochet, P.-A., Halpern, B., Martínez-Freiría, F., Mebert, K., Speybroeck, J., Bauer, A.M., Kalboussi, M., Bouazza, A., Martínez del Mármol, G. & Ouni, R. (2025). Natrix maura. The IUCN Red List of Threatened Species 2025: e.T61538A137854248. . Accessed on 21 September 2026.
  41. Saint Girons, H. (1956). Les serpents du Maroc. Variétés Scientifiques de la Société des Sciences Naturelles et Physiques du Maroc, 8, 1–29. — via Santos et al. (2024)53.
  42. Santos, X. (2000). Ecología de la culebra viperina, Natrix maura (Linnaeus, 1758), en el Delta del Ebro [Tesis doctoral]. Universitat de Barcelona. — via Santos et al. (2024)53.
  43. Santos, X. (2015). Culebra viperina – Natrix maura. In A. Salvador & A. Marco (Eds.), Enciclopedia Virtual de los Vertebrados Españoles. Museo Nacional de Ciencias Naturales. http://www.vertebradosibericos.org/ Accessed on 19 August 2026.
  44. Santos, X., & Llorente, G. A. (1997). Actividad de Natrix maura en el Delta del Ebro, analizada mediante técnicas de telemetría. Revista Española de Herpetología, 11, 63–70. — via Santos et al. (2024)53.
  45. Santos, X., & Llorente, G. A. (1998). Sexual and size-related differences in the diet of the snake Natrix maura from the Ebro Delta, Spain. Herpetological Journal, 8, 161–165.
  46. Santos, X., & Llorente, G. A. (2001a). Actividad estacional y diaria en una población de culebra viperina, Natrix maura, del Delta del Ebro. Boletín de la Asociación Herpetológica Española, 12, 22–24. — via Santos et al. (2024)53.
  47. Santos, X., & Llorente, G. A. (2001b). Seasonal variation in reproductive traits of the oviparous water snake, Natrix maura, in the Ebro Delta of northeastern Spain. Journal of Herpetology, 35(4), 653–660. — via Santos et al. (2024)53.
  48. Santos, X., Pastor, D., Llorente, G. A., & Albaigés, J. (1999). Organochlorine levels in viperine snake Natrix maura carcasses from the Ebro Delta (NE Spain): Sexual and size-related differences. Chemosphere, 39, 2641–2650. — via Santos et al. (2024)53.
  49. Santos, X., Vilardebó, E., Casals, F., Llorente, G. A., Vinyoles, D., & de Sostoa, A. (2006). Wide food availability favours intraspecific trophic segregation in predators: The case of a water snake in a Mediterranean river. Animal Biology, 56(3), 299–309. — via Santos et al. (2024)53.
  50. Santos, X., Feriche, M., León, R., Filippakopoulou, A., Vidal-García, M., Llorente, G. A., & Pleguezuelos, J. M. (2011). Tail breakage frequency as an indicator of predation risk for the aquatic snake Natrix maura. Amphibia-Reptilia, 32(3), 375–383. https://doi.org/10.1163/017353711X587264
  51. Santos, X., Azor, J. S., Cortés, S., Rodríguez, E., Larios, J., & Pleguezuelos, J. M. (2018). Ecological significance of dorsal polymorphism in a Batesian mimic snake. Current Zoology, 64(6), 745–753. https://doi.org/10.1093/cz/zox058
  52. Santos, X., Pleguezuelos, J. M., Chergui, B., Geniez, P., & Cheylan, M. (2022). Citizen-science data shows long-term decline of snakes in southwestern Europe. Biodiversity and Conservation, 31, 1609–1625. https://doi.org/10.1007/s10531-022-02415-8
  53. Santos, X., Pleguezuelos, J. M., & Mebert, K. (2024). Viperine snake Natrix maura (Linnaeus, 1758). In J. C. M. Murphy (Ed.), Aquatic snakes, diversity and natural history (pp. 456–463). JCM Natural History with Herpetological Conservation International. Updated June 2025.
  54. Schätti, B. (1982). Bemerkungen zur Ökologie, Verbreitung und intraspezifischen Variation der Vipernatter, Natrix maura (Linné, 1758) (Reptilia, Serpentes). Revue Suisse de Zoologie, 89(2), 521–542. https://doi.org/10.5962/bhl.part.82458
  55. Schätti, B. (1999). Natrix maura (Linnaeus, 1758), Vipernatter. In W. Böhme (Ed.), Handbuch der Reptilien und Amphibien Europas, Band 3/IIA: Schlangen II (pp. 483–503). Aula-Verlag. — via Santos et al. (2024)53.
  56. Schleich, H. H., Kästle, W., & Kabisch, K. (1996). Amphibians and reptiles of North Africa. Koeltz Scientific Books.
  57. Schöneberg, Y. et al. (2023). Genomics reveals broad hybridization in deeply divergent Palearctic grass and water snakes (Natrix spp.). Molecular Phylogenetics and Evolution, 184, 107787. — via Criado-Flórez et al. (2025)8.
  58. Spellerberg, I. F. (1977). Reptile body temperatures. 2. Examples of reptile voluntary temperature levels. The Herptile, 2, 20–37. — via Santos et al. (2024)53.
  59. Speybroeck, J., Beukema, W., Bok, B., & Van Der Voort, J. (2016). Field guide to the amphibians and reptiles of Britain and Europe. Bloomsbury. — via Pleguezuelos et al. (2025)40.
  60. Torres-Porras, J. (2008). Apareamiento grupal de la culebra viperina (Natrix maura). Boletín de la Asociación Herpetológica Española, 19, 37. — via Santos et al. (2024)53.
  61. Vericad, J. R., & Escarré, A. (1976). Datos de alimentación de ofidios en el Levante sur ibérico. Mediterránea, 1, 3–32. — via Santos et al. (2024)53.

كيفية الاقتباس

Ruffieux, C., & Vuillemin, R. (2026). Viperine Water Snake (Natrix maura). In: Castella, C., Iallaten, H., Ruffieux, C., & Vuillemin, R. (Eds.), Fauna Morocco. The Free Encyclopedia: Reptiles & Amphibians of Morocco. Available from https://fauna-morocco.org/ar/encyclopedia/serpentes/colubridae/natrix/natrix-maura.html (accessed 24 أكتوبر 2026).

تاريخ النشر

24 أكتوبر 2026

آخر تحديث

24 أكتوبر 2026

المؤلفون

Colin Ruffieux
Rayane Vuillemin

المراجعون

Haytam Iallaten
Mohamed Taha Aissaoui

التصوير

Rayane Vuillemin

المنهجية

كل بطاقة خلاصة علمية: نجمع الأدبيات، ونقرأ كل بحث كاملاً، ونتحقق من الحقائق من مصادرها الأصلية قدر الإمكان، ونُؤشّر على مواطن الشك لمراجعة الخبراء. تُكتب أولاً بالإنجليزية، ويراجعها الفريق، ثم تُترجَم إلى الفرنسية والعربية. كل معلومة موثّقة بمرجعها، وتُحدَّث البطاقات مع تقدّم المعرفة. إذا لاحظت خطأً أو نقصاً، يُرجى التواصل معنا لتصحيحه.